
Dans un récent Hôte cellulaire et microbe étude, les chercheurs introduisent des mutations de pointe (S) trouvées dans la variante Omicron du coronavirus 2 du syndrome respiratoire aigu sévère (SRAS-CoV-2) dans la protéine S de la souche ancestrale Wuhan-Hu 1 du SRAS-CoV-2 pour étudier l’impact fonctionnel de ces mutations.
Étude: Déterminants de l’infectiosité, du traitement et de la neutralisation des pointes dans les sous-variantes BA.1 et BA.2 d’Omicron du SRAS-CoV-2. Crédit d’image : Lightspring / Shutterstock.com
Arrière plan
Omicron est la cinquième variante préoccupante (VOC) du SRAS-CoV-2 à être identifiée depuis le début de la pandémie de maladie à coronavirus 2019 (COVID-19). Début 2022, la sous-variante Omicron BA.1 a remplacé la Delta VOC, qui était auparavant la souche dominante en circulation dans le monde. La sous-lignée Omicron BA.2 a par la suite dépassé BA.1 et a été responsable de la vague la plus récente d’infections par le SRAS-CoV-2.
Seulement environ 13 % du génome du SRAS-CoV-2 code pour la protéine S. Néanmoins, la protéine Omicron S contient le plus grand nombre de mutations par rapport aux autres variantes du SARS-CoV-2.
Plus précisément, les protéines Omicron BA.1 et BA.2 S partagent environ 20 mutations dans cette région, dont 12 résident dans le domaine de liaison au récepteur (RBD). Quatorze de ces mutations sont spécifiques de BA.1 et neuf de BA.2. Les mutations S spécifiques à la lignée restantes se trouvent dans le domaine N-terminal (NTD) de la protéine S.
De nouvelles sous-variantes d’Omicron émergent continuellement, dont certaines incluent BA.2.12.1, BA.4 et BA.5. Ces mutations contiennent des mutations S supplémentaires dans les résidus d’acides aminés (AA) L452 et F486 qui pourraient encore augmenter leurs propriétés d’évasion immunitaire et leur aptitude à la transmission.
Tous les vaccins COVID-19 actuels sont basés sur l’antigène SARS-CoV-2 Wuhan-Hu 1 S. En conséquence, des mutations dans le NTD ou le RBD de l’Omicron S pourraient augmenter la résistance de ces souches aux anticorps neutralisants (nAbs). Ces mutations peuvent également être des déterminants cruciaux de la transmissibilité plus élevée et de la pathogénicité réduite de ces variants.
À ce jour, les études précédentes n’ont pas décrit l’impact fonctionnel de la plupart des mutations d’Omicron S.
Résumé graphique
À propos de l’étude
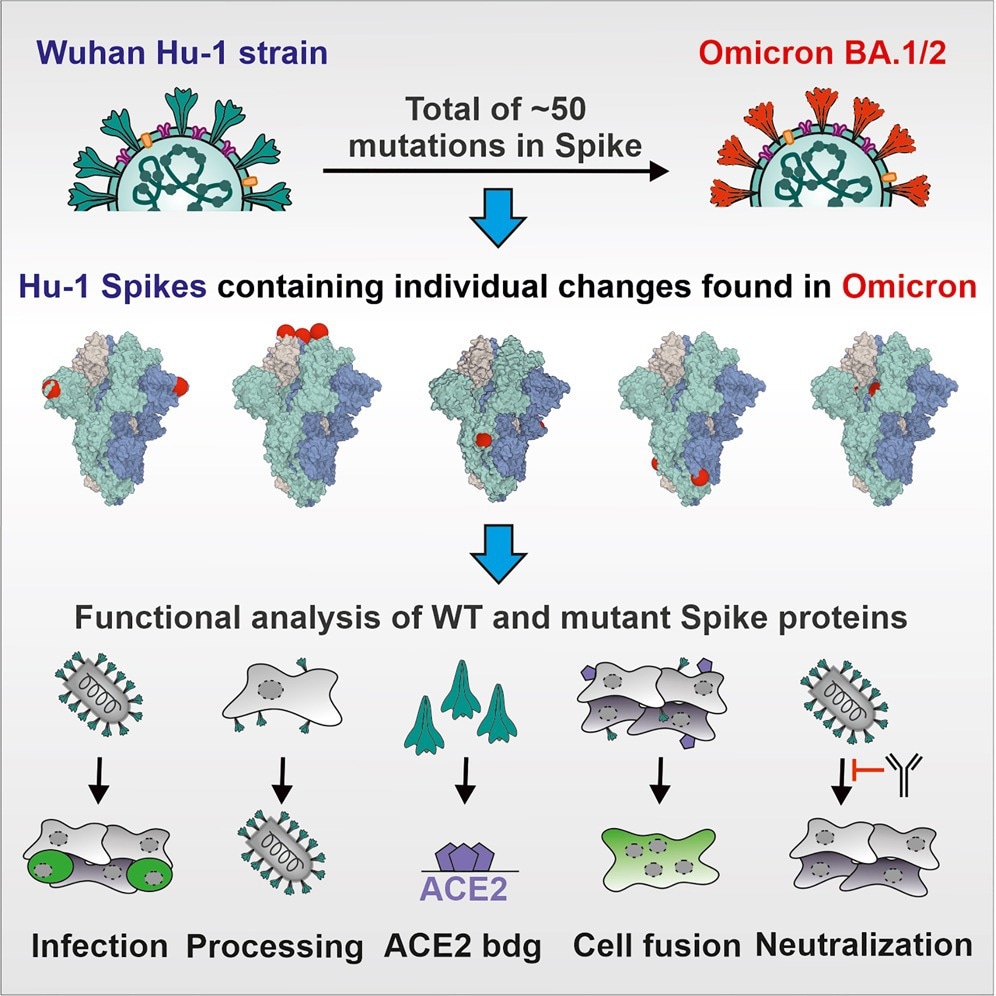
Dans la présente étude, les chercheurs ont introduit 48 mutations S des sous-lignées Omicron BA.1 et BA.2 dans le Wuhan-Hu1 S par mutagenèse dirigée. L’analyse de la séquence des gènes S a ensuite été effectuée pour confirmer que toutes les constructions contenaient les mutations souhaitées. L’impact de chaque modification de l’AA sur l’expression virale, le traitement protéolytique, l’infectiosité et la sensibilité aux attrapes et aux sérums d’individus vaccinés a également été étudié.
Des particules de virus de la stomatite vésiculeuse pseudotypées (VSVpp) avec les protéines S parentales et mutantes ont été utilisées pour analyser l’impact des mutations Omicron BA.1 et BA.2 S. Les protéines S dépourvues d’une délétion artificielle du motif de rétention du réticulum endoplasmique (ER) C-terminal ont également été utilisées pour in vitro dosages.
Les chercheurs ont également utilisé des protéines S pleine longueur contenant une étiquette d’épitope du virus simien 5 (V5) pour l’analyse de l’expression et du traitement d’Omicron S. Plusieurs tests ont également été effectués pour quantifier le nombre de cellules Caco-2 infectées par le VSVpp au fil du temps.
Résultats de l’étude
Les protéines BA.1 et BA.2 S ont présenté des efficacités d’infection considérablement réduites par rapport à la protéine Wuhan Hu-1 S, tandis que la protéine S du Delta VOC était associée à une activité considérablement accrue. La plupart des 20 changements AA dans les protéines S partagées entre BA.1 et BA.2 n’ont pas affecté l’efficacité de l’infection par VSVpp. De plus, la plupart des mutations NTD spécifiques de BA.1 et BA.2 ont causé des effets mineurs sur l’infectivité du VSVpp.
Les mutations individuelles de RBD, y compris S371F/L, S375F et T376A, ont fortement altéré l’infectivité et le traitement de S du VSVpp contenant du S. Plus précisément, S375F a presque complètement perturbé la fonction et le traitement de S, la mutation T376A spécifique de BA.2 adjacente présentant des effets perturbateurs similaires. Bien que ces mutations aient significativement réduit l’infection médiée par S, elles ont eu des effets modérés sur la neutralisation par les sérums vaccinés.
Des mutations dans les trois résidus de sérine de S371, S373 et S375 ont gravement altéré la capacité de la protéine Wuhan Hu-1 S à médier la fusion virus-cellule et cellule-cellule. De plus, les résidus mutés S371L, S373P et S375F AA ont favorisé les interactions interprotomères entre les RBD « vers le bas ».
À l’inverse, la plupart des mutations NTD spécifiques à la lignée telles que A27S, T95I, Δ142-144, G142D, INS214EPE, L212I et V213G ont été les moins efficaces pour réduire la sensibilité de S à la neutralisation par les sérums des individus vaccinés. Cette découverte corrobore les rapports précédents suggérant que le NTD est une cible des attrapes dans les sérums vaccinés.
De multiples mutations partagées dans le RBD des protéines BA.1 et BA.2 S ont réduit la sensibilité du VSVpp à la neutralisation par les sérums vaccinés. De plus, les mutations N440K ou G446S ont conféré une résistance aux anticorps thérapeutiques imdevimab, tandis que les modifications apportées à E484A et Q493R ont altéré l’efficacité du bamlanivimab. Ces résultats suggèrent que des changements simples d’AA peuvent induire une résistance des variantes contre les attrapes.
L’étude actuelle a souligné que les séquences d’Omicron dans les bases de données mondiales qui semblent coder les résidus S aux positions 371, 373 et 375 sont erronées. Étant donné que certaines variations apparentes des protéines S des variants émergents du SRAS-CoV-2 résultent d’artefacts de séquençage, il est important de les prendre en compte lors de l’étude des mutations en particulier des séquences AA.
De plus, les mécanismes moléculaires responsables de plusieurs mutations de la protéine Omicron S restent inconnus. Par exemple, les changements spécifiques à BA.2 dans le NTD ont sévèrement réduit l’infection et le traitement à médiation S ; cependant, ces changements n’affectent pas les domaines fonctionnels connus.
De même, une substitution N856K spécifique à BA.2 a généré des sites de clivage potentiels pour la protéase du site 1 (S1P) qui ont empêché l’exposition du peptide de fusion pour la fusion membranaire mais ont réduit l’infection médiée par S malgré des niveaux de traitement normaux. Inversement, N764K a augmenté l’infectiosité et les niveaux de S transformé dans VSVpp.
