Dans une étude récente publiée dans la revue PLOS Biologie, Des chercheurs français ont étudié la fonction cellulaire et le rôle antiviral de la SAMD9L humaine et de son paralogue SAMD9 (abréviation de sterile alpha motif domain-containing protein 9 and 9-like) dans la restriction du VIH-1 (abréviation de virus de l'immunodéficience humaine 1). Ils ont découvert que la SAMD9L humaine stimulée par l'interféron (IFN) inhibe le VIH-1 et les lentivirus des primates dans les phases de réplication tardive, ce qui a un impact sur la traduction virale et le trafic endosomal, tandis que le paralogue SAMD9 améliore la réplication du VIH-1.
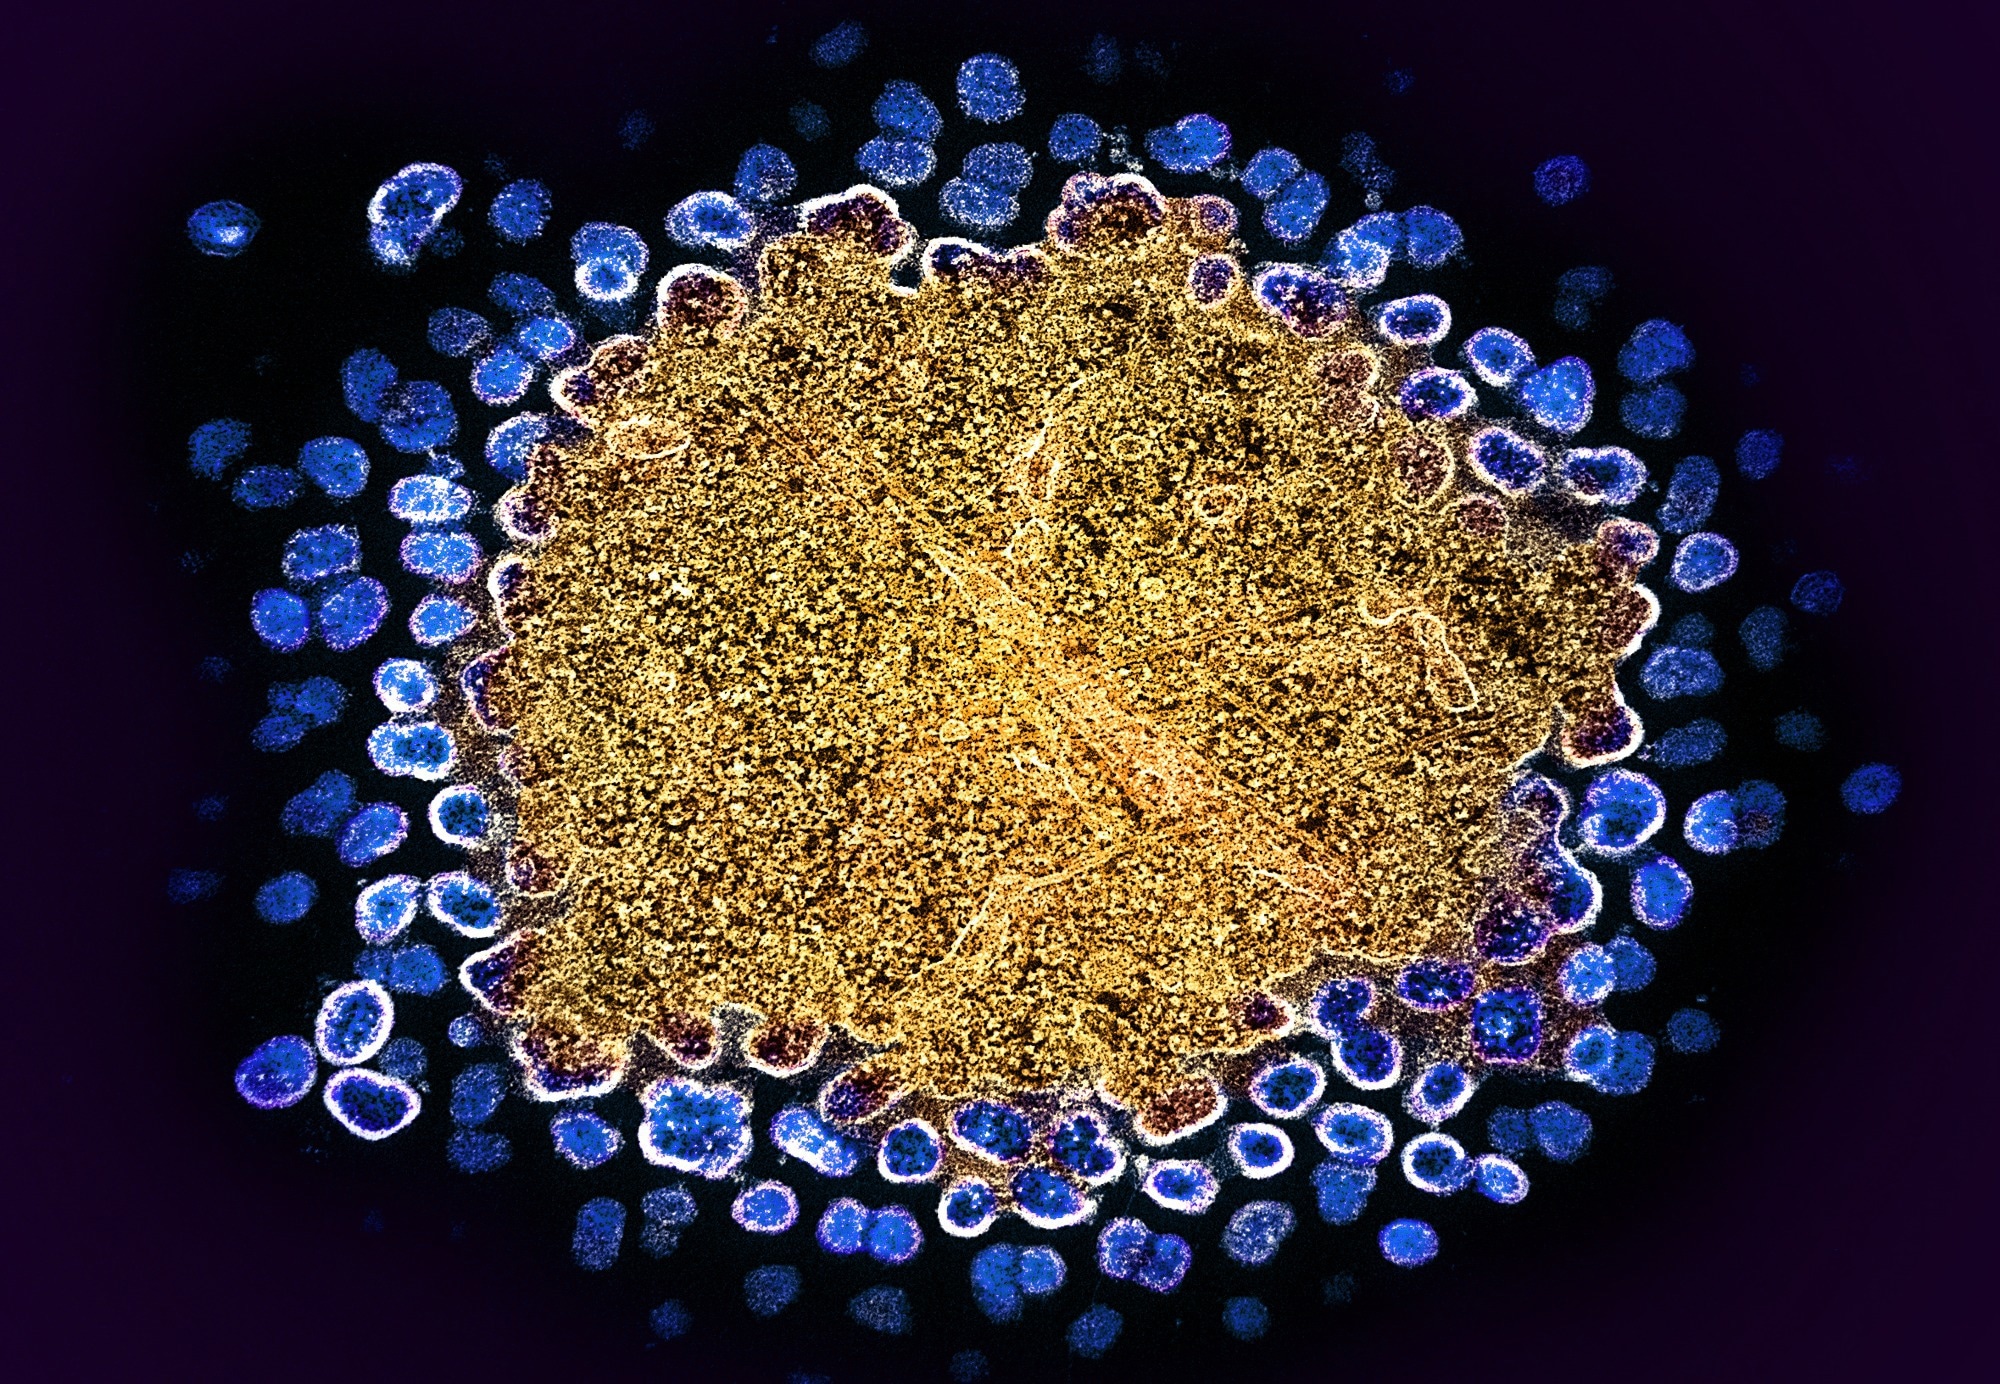
Étude : SAMD9L agit comme un facteur antiviral contre le VIH-1 et les lentivirus des primates en limitant la traduction virale et cellulaire. Crédit image : NIAID
Sommaire
Arrière-plan
SAMD9 et SAMD9L sont des gènes paralogues (gènes séparés par un événement de duplication génique) codant de grandes protéines impliquées dans des processus cellulaires critiques tels que la division cellulaire, la traduction des protéines, les réponses au stress, l'apoptose et le trafic endosomal. Les variantes génétiques de SAMD9 sont liées au syndrome MIRAGE (myélodysplasie, infection, restriction de croissance, hypoplasie surrénalienne, phénotypes génitaux et entéropathie), tandis que les variantes de SAMD9L provoquent des troubles neurologiques et hématologiques comme l'ataxie-pancytopénie et la maladie auto-inflammatoire associée à SAMD9L.
SAMD9 et SAMD9L agissent comme des facteurs de restriction pour les poxvirus en réprimant la traduction virale. Cependant, leur rôle dans la restriction d'autres virus, tels que le VIH-1, reste largement inexploré. Le VIH-1, une cause majeure du syndrome d'immunodéficience acquise (SIDA), continue d'être un problème de santé publique important. L'identification des protéines hôtes qui inhibent le VIH-1 et la compréhension de leur implication dans les fonctions cellulaires peuvent éclairer le développement de nouvelles cibles thérapeutiques contre les infections virales et les maladies génétiques. Par conséquent, dans la présente étude, les chercheurs ont examiné les rôles cellulaires et les fonctions antivirales de SAMD9 et SAMD9L dans la restriction de la réplication du VIH-1 et de certains autres virus.
À propos de l'étude
Le SAMD9L a été identifié comme étant influencé par le criblage CRISPR (courtes répétitions palindromiques groupées et régulièrement espacées) dans son impact sur le VIH-1 et d'autres lentivirus. Quatre clones du VIH-1 ont été étudiés dans des cellules 293T et le rendement viral a été mesuré à l'aide de cellules TZM-bl. L'impact du SAMD9L a été examiné plus en détail sur le VIH-2, les lentivirus simiens (SIVagm.Tan1, SIVmac), le gammarétrovirus (MLV ou virus de la leucémie murine) et les virus à ARN (acide ribonucléique) MOPV (virus mopeia) et VSV (virus de la stomatite vésiculaire). Les protéines Gag ont été quantifiées par ELISA, et Env et Gag ont été analysées par Western blot. Les niveaux d'ARN viral et d'ARN hôte ont été surveillés par RT-qPCR (réaction en chaîne par polymérase de transcription inverse quantitative). L'effet du SAMD9L sur la maturation de Gag a été évalué avec les médicaments saquinavir et indinavir. La réplication lentivirale précoce a été testée avec un seul tour de VIH-1 et de SIVmac pseudotypé avec VSVg.
L'expression de SAMD9L a été examinée dans des conditions basales et stimulées par l'IFN-I sur des lignées cellulaires et validée dans des cellules primaires. À l'aide de shRNA (short hairpin RNA), SAMD9L a été réduit au silence dans des cellules HeLaP4P5 stimulées par l'IFN-I, et la réplication du VIH-1 a été testée avec différentes souches. La structure de SAMD9 et SAMD9L a été analysée à l'aide d'outils bioinformatiques. L'effet des mutations (SAMD9L-E198A/D243A et chSAMD9L-D237A) a été évalué sur le VIH-1 et le SIVagm.Tan1. L'effet d'une mutation de gain de fonction dans SAMD9L (SAMD9L-F886Lfs*11) a été testé sur MLV et MOPV.
Résultats et discussion
Il a été démontré que SAMD9L inhibait le rendement du virus infectieux du VIH-1, tandis que SAMD9 l'augmentait. SAMD9L a démontré qu'il limitait fortement les souches transmises/fondatrices du VIH-1 de manière dose-dépendante, indépendamment de l'utilisation de corécepteurs. SAMD9L a également limité le VIH-2, SIVagm.Tan1 et SIVmac mais n'a pas affecté MLV, MOPV ou VSV, indiquant un effet antiviral spécifique sur les lentivirus.
SAMD9L a significativement réduit les niveaux de Gag dans le surnageant viral. SAMD9L a diminué l'expression des protéines Gag et Env, ce qui contraste avec l'effet d'amélioration de SAMD9. SAMD9 et SAMD9L n'ont pas affecté les espèces d'ARN du VIH-1 ou les niveaux d'ARN des cellules hôtes, ce qui suggère un mécanisme post-transcriptionnel. SAMD9L a inhibé Gag p55 même sous traitement par inhibiteur de protéase, indiquant un effet de prématuration. SAMD9L n'a pas eu d'impact sur les phases précoces de réplication lentivirale, ce qui suggère une spécificité envers la réplication tardive.
Sous stimulation par l'IFN-I, l'expression endogène de SAMD9L était détectable dans diverses lignées cellulaires, confirmant que SAMD9L était un gène stimulé par l'interféron. L'inactivation de SAMD9L a entraîné une augmentation significative de trois fois de la réplication du VIH-1 par rapport aux cellules témoins. Cela a montré que SAMD9L stimulé par l'IFN limitait la réplication du VIH-1, démontrant sa pertinence fonctionnelle en tant que facteur antiviral. De plus, un site actif de type Schlafen (SLFN) au sein de SAMD9L s'est avéré essentiel à sa fonction antilentivirale dans toutes les espèces de mammifères.
Il a été découvert que la mutation E198/D243 supprimait la capacité de SAMD9L à inhiber la synthèse des protéines cellulaires. Ces résultats soulignent le rôle essentiel du site actif de type SLFN dans la régulation par SAMD9L de la production de protéines cellulaires et virales. De plus, l'analyse par Western blot a révélé les interactions spécifiques virales de SAMD9L. Alors que les lentivirus se sont révélés sensibles à la fois au SAMD9L de type sauvage et au gain de fonction, le MLV et le MOPV ont montré une sensibilité variable au SAMD9L, renforcée par la mutation gain de fonction.
Dans l'ensemble, l'étude a identifié SAMD9L comme un nouveau facteur antiviral qui limite le VIH-1 et d'autres lentivirus via un site de ribonucléase SLFN, soulignant son rôle unique dans l'immunité innée antivirale. Cependant, l'étude n'a pas pu aborder la pertinence physiologique de SAMD9L du côté de l'hôte en raison de l'incapacité à obtenir une élimination de SAMD9L endogène dans des cellules T spécifiques, probablement en raison de la toxicité.
SAMD9L restreint la production de protéines lentivirales.UN) Montage expérimental. (B) Production virale relative de divers lentivirus de primates, mesurée par ELISA p24 (pour les souches du VIH-1) ou p27 (pour le VIH-2 et les SIV) dans le surnageant des cellules productrices avec SAMD9L, normalisée au contrôle. (C) Analyses par transfert Western des protéines SAMD9L et HIV-1 Env et Gag dans les cellules productrices de virus et dans le surnageant pour 2 souches HIV-1 T/F. La quantification est fournie pour l'expression des protéines p55 Env et Gag, normalisée par rapport aux protéines totales dans la fraction cellulaire et exprimée en différence de facteur par rapport au témoin (normalisée à 1). (D) Similaire à C dans le contexte de quantités croissantes de SAMD9 et SAMD9L. La quantification est fournie pour les expressions des protéines gp160 et Gag p24 normalisées par rapport à la tubuline et exprimées en différence de facteur par rapport au témoin (normalisée à 1). Statistiques : **, valeur p < 0,01 ; *, valeur p < 0,05 ; ns, valeur p > 0,05.
Conclusion
En conclusion, les résultats suggèrent des cibles thérapeutiques potentielles pour le VIH-1 et les infections virales apparentées et étendent la défense antivirale connue de SAMD9L au-delà des poxvirus. De plus, les résultats offrent un aperçu des maladies génétiques liées aux mutations de SAMD9L, informant et appelant à de futures études sur leurs effets cellulaires et antiviraux.
