
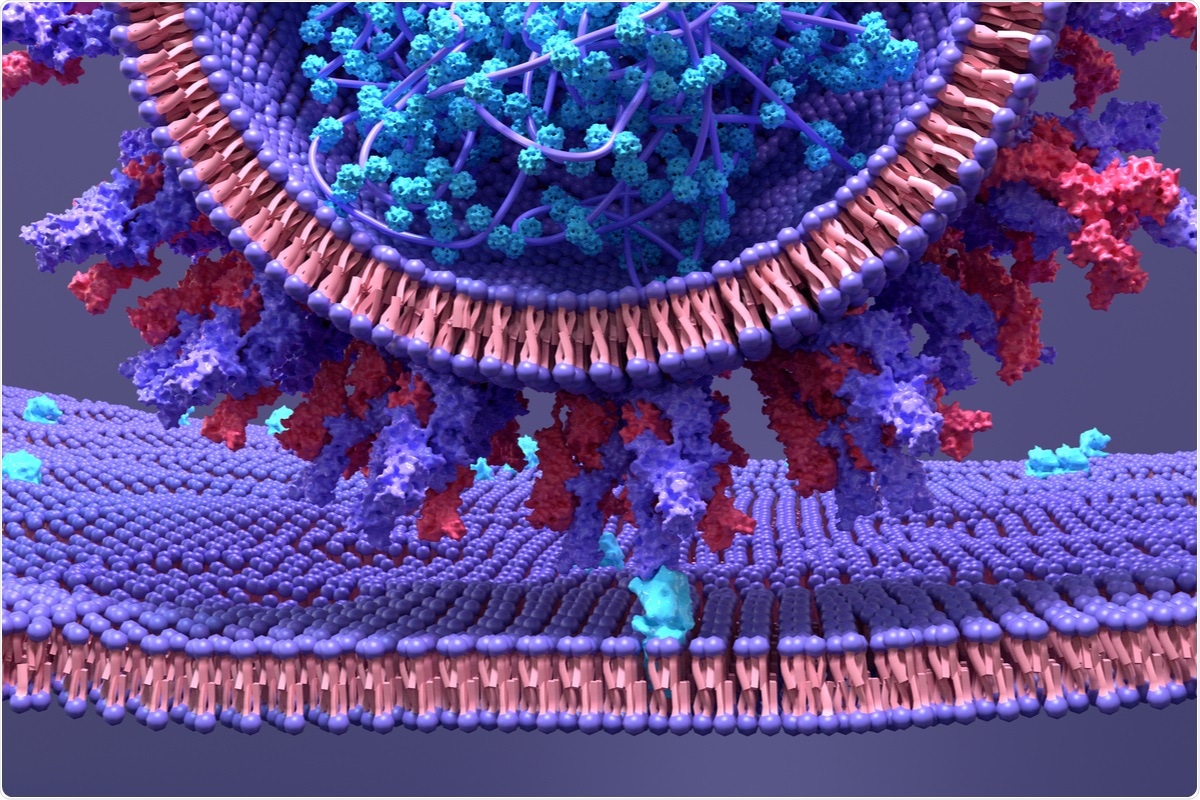
Une nouvelle étude fascinante et opportune montre comment la variante Delta du nouveau coronavirus 2 du syndrome respiratoire aigu sévère (SRAS-CoV-2) a atteint une transmissibilité et une résistance à la neutralisation plus élevées.
Une version préimprimée de l’étude est disponible sur le site bioRxiv* serveur, tandis que l’article est soumis à une évaluation par les pairs.
Sommaire
Contexte
La pandémie actuelle de la maladie à coronavirus 2019 (COVID-19) a été déclenchée par le SRAS-CoV-2. Malgré les progrès dans sa gestion, de nouvelles variantes continuent d’émerger, montrant souvent une résistance partielle aux anticorps préexistants provoqués par des vaccins ou une infection naturelle.
La variante Delta B.1.617.2 est une variante du virus qui est apparue pour la première fois en Inde mais s’est rapidement propagée et est devenue dominante en quelques mois. Il s’agit d’un variant préoccupant (COV) car il a un potentiel de transmissibilité deux fois supérieur à celui de la souche de référence de Wuhan.
Des recherches antérieures suggèrent qu’il a une période d’incubation plus courte, tandis que la charge virale est mille fois supérieure à celle obtenue par les lignées antérieures. Il a provoqué des infections à poussées après une vaccination complète. Il est donc important de comprendre les mécanismes sous-jacents qui le rendent si différent afin que des stratégies d’intervention appropriées puissent être développées.
Le pic viral est une glycoprotéine de l’enveloppe de surface qui médie la fixation et l’entrée du virus dans la cellule hôte. Présent dans la nature sous forme de trimère, il se lie au récepteur viral de l’enzyme de conversion de l’angiotensine 2 (ACE2).
Le pic a deux domaines, S1 et S2, qui interviennent respectivement dans l’engagement des récepteurs et la fusion membranaire. Le clivage en ces deux fragments se fait à l’aide d’une protéase de type furine hôte.
La liaison au récepteur est suivie d’un clivage de pointe via l’enzyme hôte TMPRSS2, ou les cathepsines B et L. Cela provoque la chute du domaine S1, tandis que S2 subit une cascade d’événements qui provoque la fusion du virus avec la membrane cellulaire et les membranes cellulaires adjacentes pour fondre.
Ceux-ci favorisent l’entrée virale dans la cellule ainsi que la propagation de l’infection aux cellules voisines via la formation de syncytia.
Le domaine S1 a un NTD (domaine N-terminal), un RBD (domaine de liaison au récepteur) et deux CTD (domaines C-terminaux), tous entourant un faisceau d’hélices qui comprend le domaine S2 de préfusion. Les RBD peuvent être dans la conformation « haut » ou « bas », lorsqu’il est accessible pour la liaison au récepteur ou non, respectivement.
Ce mouvement au niveau du RBD empêche la réponse immunitaire de l’hôte de cibler ce site fonctionnellement important sur le virus.
Qu’a montré cette étude ?
Les chercheurs ont découvert que la pointe Delta fusionne plus efficacement les membranes des cellules adjacentes, augmentant avec le temps. Lorsqu’il est répliqué à l’aide d’un pseudovirus avec une pointe conçue qui favorise l’incorporation dans les particules virales, il a été observé que la variante Delta infectait les cellules beaucoup plus rapidement que toute autre variante, en une heure.
Toutes les variantes ont atteint leur niveau maximal d’infection en huit heures. En comparant les variantes de pointe Gamma, Kappa et Delta, ils ont trouvé que le trimère de pointe de préfusion représentait moins de 40 % de l’ensemble, pour la pointe Gamma, avec un clivage de pointe inefficace par la furine.
En revanche, la variante Delta a formé un seul pic de pointe de préfusion, indiquant qu’elle est très stable dans l’état complexe clivé S1/S2, similaire aux variantes de pointe G614 et bêta.
La liaison aux récepteurs était plus forte pour le pic Gamma par rapport à G614 en raison des mutations K417T, E484K et N501Y dans le RBD. Le Delta avait une affinité intermédiaire, peut-être parce que la liaison au récepteur provoque la dissociation de la sous-unité S1, en particulier avec l’ACE2 dimère. Cependant, la dissociation des pointes du récepteur était comparable pour les trois variantes.
Le trimère G614 s’est lié aux anticorps du plasma convalescent dirigés contre la protéine de pointe, soit la NTD, soit la RBD, mais le mutant Gamma ne s’est pas lié aux anticorps RBD et à l’un des anticorps NTD. Pour l’autre anticorps NTD, il avait une affinité réduite.
Le variant Delta ne s’est pas lié aux anticorps NTD, mais a conservé sa liaison aux autres. L’affinité de liaison était liée à la capacité de neutralisation pour presque tous les anticorps. Les mutations ont affecté la sensibilité à la neutralisation médiée par les anticorps pour la variante Gamma plus que pour la variante Delta.
Structure des trimères à pointes
Les structures microscopiques cryoélectroniques des trimères à pointes ont été examinées, montrant qu’aucun changement structurel majeur ne s’est produit dans les différentes variantes par rapport au parent G614. Le trimère Delta est le plus stable parmi les variantes de pointes, tandis que la pointe trimérique de préfusion Gamma a tendance à se dissocier.
Lorsque le trimère à pointe Delta a été superposé au trimère parent G614 dans la conformation RBD fermée, en se concentrant sur la région S2, les différences étaient les plus apparentes dans la MTN, avec ses trois mutations et une délétion à deux résidus.
Lorsque les NTD sont alignées, la boucle entre les résidus 143-154 apparaît prendre une forme différente. Cela le fait faire face à la membrane du virus. Simultanément, les mutations remodèlent le segment N-terminal et une autre boucle entre les résidus 173-187. Cela modifie la forme de l’antigène au niveau du groupe d’épitopes NTD-1 dans la NTD.
De tels changements aident à expliquer pourquoi les anticorps NTD-1 ne parviennent pas à se lier et à neutraliser le variant Delta aussi efficacement. Pendant ce temps, les deux mutations Delta RBD L452R et T478K ne provoquent pas de changements structurels et ne se trouvent pas sur l’interface ACE2. Ils ne font pas non plus partie d’un épitope neutralisant, car ils n’altèrent ni la liaison ni la neutralisation.
Une autre mutation est le S2 D950N, qui peut changer l’état électrostatique local.
Quelles sont les implications ?
Des explications sont recherchées sur la transmissibilité accrue du variant Delta par rapport au COV Alpha, lui-même beaucoup plus infectieux que la souche Wuhan. Il est possible que le processus de réplication virale du variant Delta fasse lui-même l’objet de mutations uniques qui accélèrent la réplication génomique.
De nombreuses autres étapes sont également essentielles à l’assemblage des particules virales. Cependant, pour expliquer comment la charge virale dans la cellule infectée est mille fois plus élevée pour cette variante. Bien que la liaison de l’ACE2 par cette variante soit comparable à celle des variantes précédentes et que le clivage des pointes reste similaire, la présente étude révèle deux autres facteurs pouvant contribuer à sa vitesse inhabituelle de transmission et de propagation.
L’un est l’augmentation de l’efficacité de la fusion avec une expression de pointe Delta élevée sur la surface cellulaire même lorsque les niveaux d’ACE2 sont faibles, par rapport à toute autre variante. Deuxièmement, l’étape de fusion est optimisée pour permettre l’entrée dans la cellule même à de faibles niveaux d’ACE2.
Cette optimisation peut expliquer pourquoi la variante Delta peut se transmettre lors d’une exposition relativement brève et infecter rapidement beaucoup plus de cellules hôtes, entraînant une courte période d’incubation et une charge virale plus élevée pendant l’infection.», écrivent les chercheurs.
D’autres études seront nécessaires pour le confirmer, en utilisant des virus authentiques plutôt que le trimère de pointe ou la construction RBD utilisée dans cette expérience.
Les changements structurels semblent insuffisants pour expliquer l’augmentation de la fusogénicité. La mutation D950N, trouvée uniquement dans la variante Delta, supprime une charge négative de chacun des protomères de la pointe trimérique. Son emplacement à proximité d’une éventuelle unité de contrôle de la protéine de pointe peut déstabiliser la sous-unité S2 de préfusion par des mécanismes électrostatiques.
Une telle perte de stabilité ne peut pas être trop importante, car elle pourrait amener le trimère de pointe à changer de conformation trop tôt et ainsi devenir inactif avant que la fusion membranaire ne se produise.
Curieusement, alors que le RBD conserve sa structure et sa fonction parmi toutes les variantes, avec des mutations ne se produisant que sur quelques sites spécifiques, le NTD semble permettre le réarrangement de ses boucles de surface, de ses brins bêta centraux et de quelques glycanes N-liés tout en conservant l’infectivité mais échapper à la réponse immunitaire de l’hôte.
Le point important à retenir est que les anticorps thérapeutiques doivent éviter de cibler les ATN car ils sont facilement capables de les échapper. Les vaccins de nouvelle génération dépendront de ces études de structure, d’antigénicité et de fonction pour choisir les antigènes les plus efficaces qui provoquent des anticorps contre les épitopes les plus hautement conservés.
*Avis important
bioRxiv publie des rapports scientifiques préliminaires qui ne sont pas évalués par des pairs et, par conséquent, ne doivent pas être considérés comme concluants, orienter la pratique clinique/le comportement lié à la santé, ou traités comme des informations établies.
