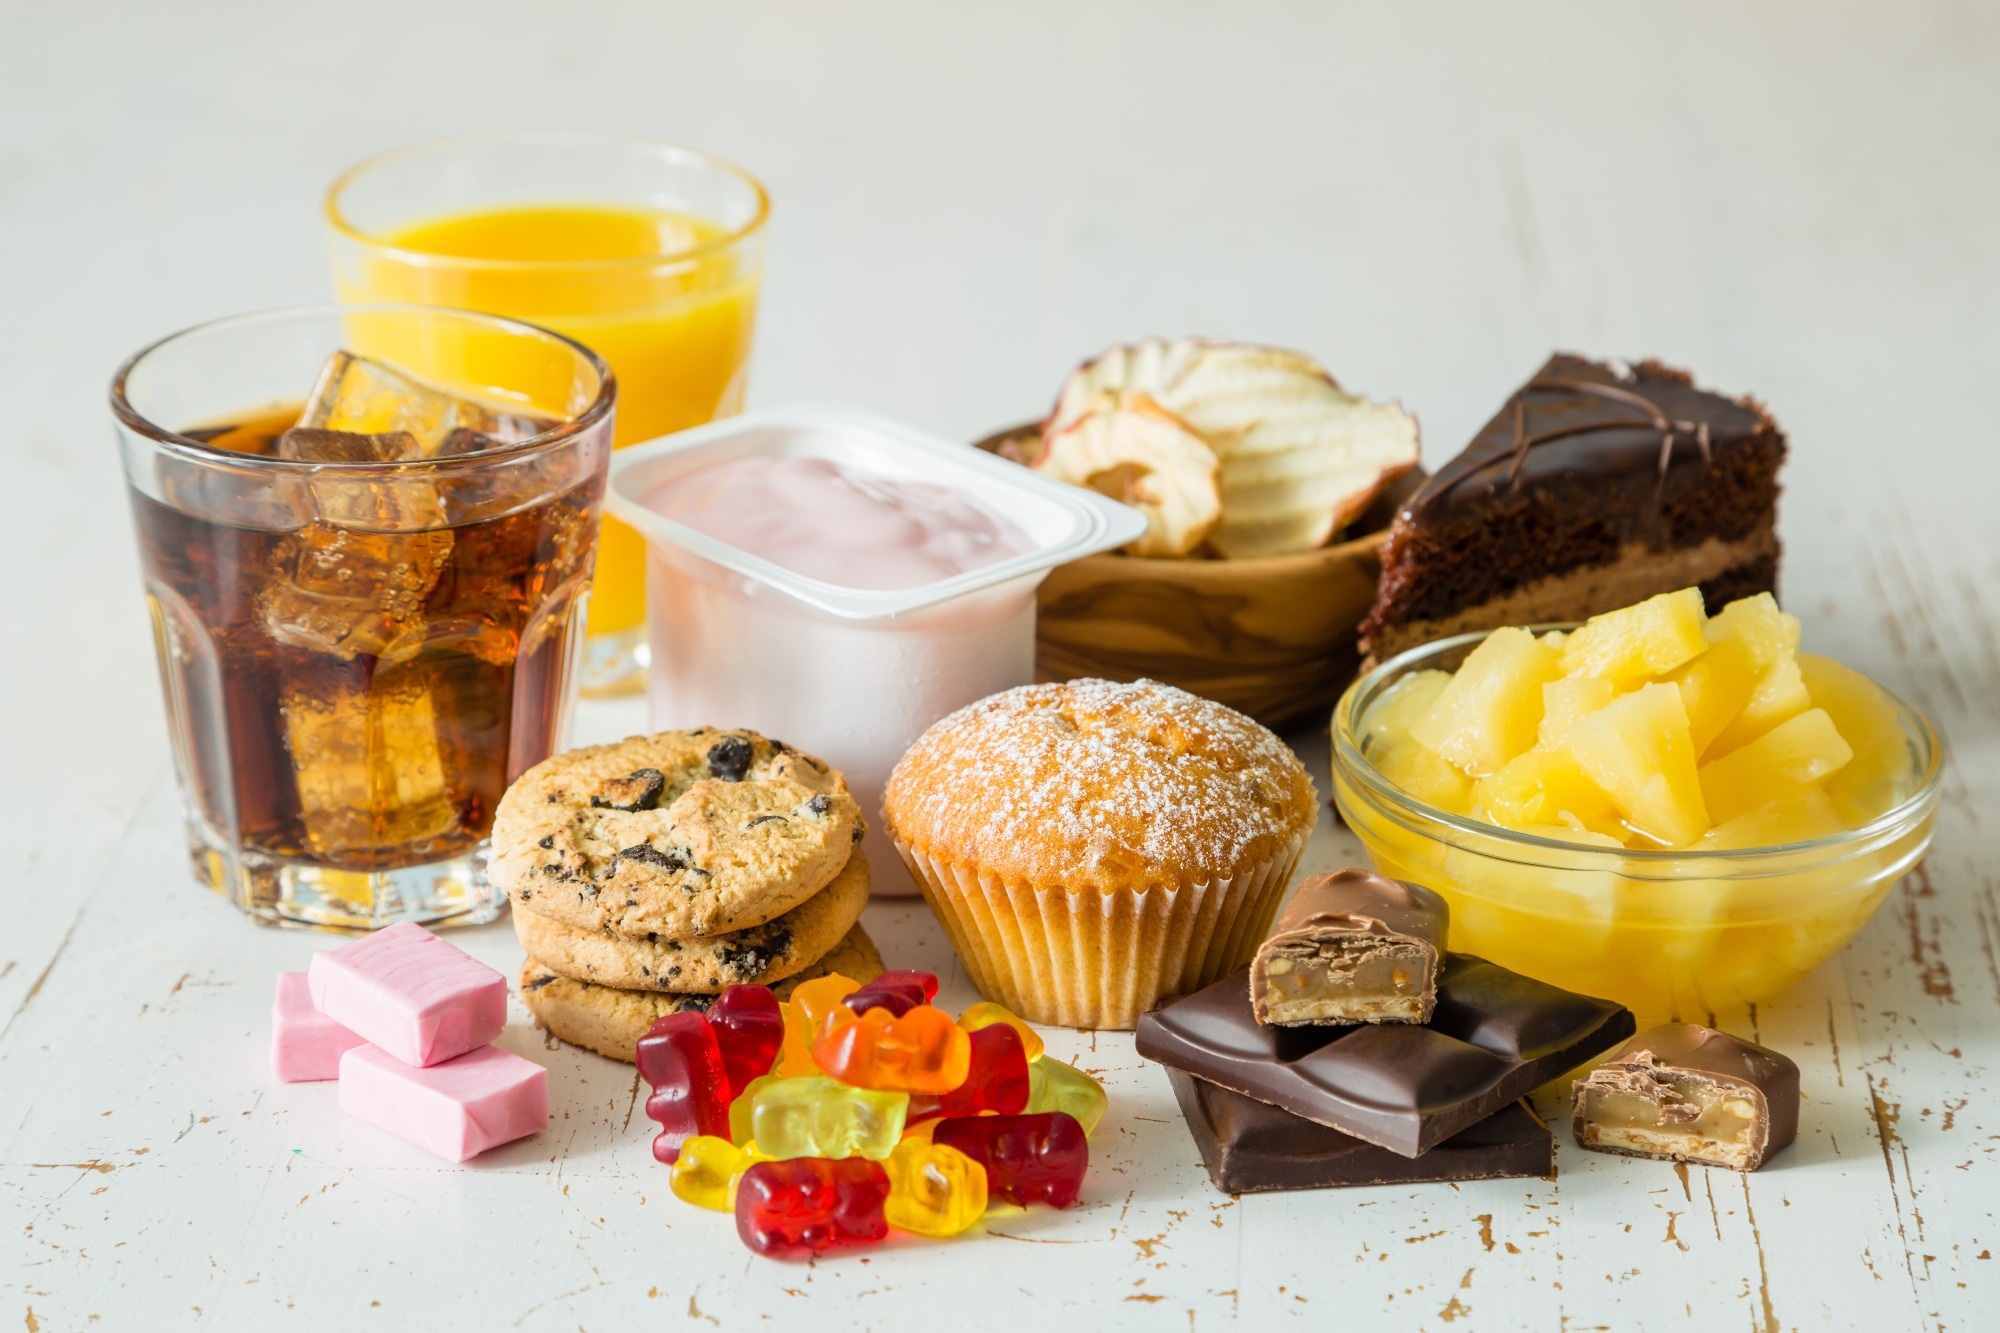
La nouvelle recherche relie les régimes riches en fructose, en particulier des aliments transformés, aux signaux d'appétit perturbés et aux changements de cerveau à long terme, ce qui soulève des préoccupations pour le développement du cerveau.
Revue: Eating Mindful: un aperçu approfondi du métabolisme du fructose et de ses effets sur la régulation de l'appétit et la fonction cérébrale. Crédit d'image: Oleksandra Naumenko / Shutterstock
Une récente étude de revue publiée dans le Journal of Nutrition and Metabolism a examiné les conséquences métaboliques de l'apport en fructose et ses effets sur le cerveau.
Tout au long de l'évolution, les mammifères peuvent s'être appuyés sur la consommation et le métabolisme de l'excès de fructose comme mécanisme de survie pour stocker l'énergie et assurer sa disponibilité pendant les périodes de rareté. Cela suggère qu'une consommation élevée en fructose entraîne un état de faible énergie, caractérisée par une réduction de la production et de l'utilisation de l'adénosine triphosphate (ATP), tout en favorisant la faim et en encourageant un comportement de recherche alimentaire. Le glycogénolyse, l'oxydation des acides gras et la lipolyse sont inhibés pour stocker les graisses et le glycogène dans le foie.
Ce mode de survie est unique au fructose, car le glucose a des effets opposés. Le glucose est un carburant pour les demandes d'énergie immédiates, tandis que le fructose stocke l'énergie pour les besoins futurs. Cependant, avec l'augmentation des aliments transformés, des modes de vie sédentaires et des régimes riches en fructose à l'époque contemporaine, ce processus autrefois compatible a des effets néfastes. Dans cette revue, les chercheurs ont étudié l'impact de l'apport élevé en fructose sur l'hippocampe et d'autres régions cérébrales impliquées dans le système d'appétit-récompense.
Surtout, l'étude a noté que les effets du fructose peuvent varier en fonction de l'âge, avec des individus plus jeunes, en particulier à l'adolescence, étant plus vulnérables aux impacts neurocognitifs dus au développement du cerveau continu.
Sommaire
Métabolisme et transport du fructose
Le métabolisme du fructose n'a pas les étapes réglementaires trouvées dans la voie métabolique du glucose. Le fructose alimentaire est principalement absorbé par l'intestin grêle via le transporteur GLUT5. L'intestin grêle joue un rôle initial crucial, métabolisant une partie significative (jusqu'à 90% à des doses physiologiques) de fructose ingéré dans d'autres métabolites, tels que le glucose, protégeant ainsi le foie d'une exposition directe excessive au fructose. Une fois à l'intérieur de la cellule, le fructose est rapidement phosphorylé par la fructokinase (KHK) au fructose-1-phosphate (F1P), en contournant le contrôle de l'enzyme régulative clé phosphofructokinase-1 (PFK-1). Sans une telle inhibition de rétroaction, F1P catabolise davantage en phosphate de glycéraldéhyde et de dihydroxyacétone (DHAP), qui peut finalement être phosphorylé pour former du glycéraldéhyde-3-phosphate (G3P).
Le G3P et le DHAP peuvent être convertis pour former des acides gras libres, du méthylglyoxal et des triglycérides par la lipogenèse de novo, ou ils peuvent être catabolisés en composés tels que l'oxalacétate, l'acétyl-COA et l'alanine dans la voie glycolytique en aval. La surproduction sans inhibition de rétroaction entraîne une excès de sous-produits métaboliques impliqués dans la synthèse des triglycérides, la synthèse des acides gras et la glycolyse, contribuant aux perturbations métaboliques.
L'excès de fructose, en particulier de la consommation à forte dose chaque jour avec des aliments transformés et des boissons sucrées, submerge la capacité de l'intestin grêle. Ce fructose non métabolisé passe ensuite à travers le transporteur GLUT2 dans la veine porte, atteignant le foie, où il favorise la formation de graisse, et potentiellement le côlon, modifiant le microbiote intestinal. De petites quantités peuvent également affecter le cerveau.
Effets métaboliques: fruits entiers vs sources transformées
Surtout, l'examen souligne que les effets métaboliques du fructose dépendent fortement de sa source. Le fructose des fruits entiers, consommés avec des fibres, des vitamines et des antioxydants, est absorbé plus lentement. La fibre aide à réguler l'absorption, à prévenir les pics rapides de la glycémie et de la production de graisses hépatiques, et contribue aux avantages métaboliques globaux et à une inflammation réduite.
En revanche, le fructose des boissons sucré (SSB) et les jus de fruits, manquant de fibres, sont absorbés rapidement. Cette absorption rapide submerge l'intestin grêle, entraînant une exposition accrue du foie, une lipogenèse de novo améliorée (production de graisses), une accumulation de graisse hépatique, une résistance à l'insuline et une dyslipidémie. Des études ont lié le fructose à partir de boissons sucrées (SSB) et de jus, mais pas de fruits entiers, à des profils de biomarqueurs défavorables, y compris des marqueurs inflammatoires et une teneur en lipides intrahépatiques plus élevée.
Régions cérébrales impliquées dans la satiété et la consommation alimentaire
L'hypothalamus joue un rôle clé dans l'homéostasie de l'apport alimentaire, recevant des signaux du tractus gastro-intestinal via le tronc cérébral. Cinq noyaux hypothalamiques, paraventriculaires, ventromédiaux, latéraux, arqués et dorsomédiaux, ont été associés à la régulation de l'appétit et à l'apport alimentaire. Dans le noyau arqué, les neurones de premier ordre servent de capteurs métaboliques, intégrant les signaux périphériques et exerçant des effets antagonistes sur l'apport alimentaire.
En particulier, un sous-ensemble de neurones exprimant le neuropeptide Y (NPY) et le peptide lié à l'Agouti (AGRP) projette leurs effets aux neurones de second ordre dans le noyau paraventriculaire, induisant ainsi les effets orexigènes qui stimulent l'appétit. Inversement, un autre groupe de neurones exprimant la cocaïne et la transcription liés à l'amphétamine (CART) et la pro-opiomelanocortine (POMC) se projettent vers des neurones de second ordre dans la région hypothalamique latérale, conduisant à des effets anorexigènes ou à l'inhibition de la consommation alimentaire.
La régulation de la satiété et de l'appétit implique un réseau complexe de zones cérébrales. Il est également soumis aux influences des récompenses hédoniques, telles que la nourriture, l'environnement, l'état émotionnel et la palatabilité. Une méta-analyse a révélé que l'amygdale, l'insula, le cortex orbitofrontal et l'hippocampe étaient corrélés avec des régulateurs d'appétit, tandis que le noyau caudé, l'hypothalamus, le thalamus, le cortex cingulaire antérieur et les putamen fonctionnaient comme des réformeurs de satiété. L'insula et le cortex orbitofrontal semblent être impliqués dans les deux.
Effets du fructose sur les régulateurs d'énergie hypothalamique
Les niveaux d'énergie dans le corps régulent les signaux pour que les hormones et les neurones soient inhibés ou activés. Lorsque les réserves lipidiques sont élevées dans le corps, les niveaux de l'hormone de leptine augmentent. La leptine exerce un effet anorexigène en inhibant les neurones AGRP / NPY et en augmentant les neurones POMC / CART, diminuant ainsi l'apport alimentaire. De même, les niveaux d'insuline augmentent et exercent des effets anorexigènes après l'apport alimentaire. Ces hormones, ainsi que des peptides intestinaux comme le GLP-1 (satiété) et la ghréline (faim), régulent l'appétit.
Dans le cas de l'énergie excessive, les niveaux d'ATP augmentent, tandis que les niveaux d'adénosine monophosphate (AMP) diminuent. L'AMP active la protéine kinase activée par l'AMP (AMPK). Par conséquent, une énergie élevée (faible AMP) entraîne une inactivation AMPK (déphosphorylation). AMPK catalyse normalement la phosphorylation (inactivation) de l'acétyl-CoA carboxylase (ACC), une enzyme clé de la synthèse des acides gras. Ainsi, lorsque l'AMPK est inactif (dans un état de haute énergie), l'ACC est active (déphosphorylée). L'activation de l'ACC est importante lors de l'équilibre énergétique positif, en particulier dans l'hypothalamus, où il augmente la malonyl-CoA, un produit d'ACC, qui supprime l'apport alimentaire.
Divers neuropeptides de l'hypothalamus sont exprimés en réponse aux niveaux de malonyl-CoA. Les signaux de leptine et d'insuline inhibent normalement l'activité de l'AMPK, contribuant au contrôle de l'appétit. Cependant, le fructose a une capacité limitée à stimuler l'insuline et la leptine. Ce manque de stimulation, combiné au métabolisme rapide du fructose, qui peut potentiellement épuiser l'ATP et augmenter l'ampli dans les cellules hypothalamiques, conduit à l'activation de l'AMPK. L'AMPK actif inactive alors l'ACC, réduisant les niveaux de malonyl-CoA. De plus, le fructose excite minimalement les neurones anorexigènes POMC tout en maintenant les signaux de neurones AGRP / NPY orexigène. Cela réduit la satiété par rapport au glucose et augmente l'apport alimentaire.
Excès d'apport en fructose, neuroinflammation et dysfonctionnement cognitif
Le fructose est significativement plus réactif dans la formation de produits finaux de glycation avancés (AGE) que le glucose, contribuant à la neuroinflammation et au stress oxydatif. Des études indiquent que les âges dérivés du fructose s'accumulent dans les neurones hippocampiques, déclenchant des voies inflammatoires (telles que RAGE / NF-κB) qui conduisent à une gliose réactive, à un dysfonctionnement mitochondrial et à une déficience neuronale, qui sont toutes mirales de neurodégénérescence. Une augmentation de la production d'acide urique résultant du métabolisme du fructose peut également induire une inflammation dans l'hippocampe.
Une étude a révélé que PGC1-α et COX2, les facteurs transcriptionnels impliqués dans la biogenèse mitochondriale et la synthèse énergétique, ont été affectés négativement dans l'hippocampe après seulement une semaine de consommation de fructose élevée dans les modèles animaux. Cela était indépendant des altérations métaboliques périphériques, telles que la prise de poids, ce qui remet en question la notion selon laquelle les changements dans le tronc cérébral uniquement des altérations périphériques ou du syndrome métabolique. Cela suggère que le fructose peut avoir des impacts négatifs directs et précoces sur le cerveau, en particulier concernant les périodes de neurodéveloppement critiques comme l'enfance et l'adolescence.
D'autres études ont noté que l'apport élevé en fructose diminue la signalisation par des récepteurs cérébraux cruciaux, tels que le récepteur de l'insuline (INSR) et le récepteur du peptide-1 de type glucagon (GLP-1R), dans l'hippocampe. Les deux récepteurs jouent des rôles neuroprotecteurs clés dans la mémoire, l'apprentissage et la survie neuronale. Ces résultats étaient basés sur des modèles animaux et une validation supplémentaire dans les études humaines est nécessaire.
Bien que certaines études animales suggèrent que certains effets sur le cerveau, tels que la neuroinflammation ou la signalisation altérée, peuvent être partiellement réversibles avec l'amélioration alimentaire, d'autres montrent qu'une exposition à long terme à long terme peut provoquer des changements persistants ou irréversibles, en particulier lorsqu'il est initié au début de la vie.
Remarques finales
En résumé, la prévalence croissante des régimes riches en fructose présente des risques de santé importants en raison de son métabolisme rapide et non réglementé, qui perpétue un cycle de régulation positive de ses voies métaboliques et de ses comportements de recherche de nourriture. La source de fructose a un impact significatif sur son sort métabolique, les sources transformées posant des risques plus importants que les fruits entiers. Une consommation élevée en fructose pendant des périodes prolongées peut provoquer des altérations cérébrales associées à la signalisation de l'insuline, à la neurogenèse, à la neuroinflammation et au dysfonctionnement mitochondrial, qui pourraient être des contributeurs initiaux à la déficience cognitive et aux maladies neurodégénératives. L'examen se termine par un appel à une sensibilisation accrue à la santé publique, en particulier en ce qui concerne les modèles alimentaires chez les enfants et les adolescents. Il souligne la nécessité d'études cliniques humaines supplémentaires pour élucider les effets à long terme à divers stades de vie.
