Plus de 6 millions de personnes sont décédées dans le monde à la suite de la pandémie de maladie à coronavirus 2019 (COVID-19), causée par le coronavirus 2 du syndrome respiratoire aigu sévère (SARS-CoV-2). Environ 64 % de la population mondiale a reçu au moins une dose d’un vaccin COVID-19 malgré la disponibilité de vaccins approuvés et d’autorisation d’utilisation d’urgence (EUA). Aux États-Unis, où environ 64,7 % des personnes sont complètement vaccinées et 76,1 % ont reçu au moins une dose, le taux de vaccination a stagné en raison de divers facteurs tels que les inquiétudes concernant les vaccinations existantes et la nécessité de davantage de tests chez les jeunes enfants.
Afin d’augmenter l’immunité et l’accessibilité aux vaccins, des vaccins de deuxième génération sont actuellement développés pour compléter ou remplacer les stratégies de vaccination existantes. L’utilisation de nanoparticules de ferritine est une nouvelle méthode pour augmenter les réponses immunitaires contre un antigène pertinent, tel que la glycoprotéine de pointe (S).
La glycoprotéine S du SRAS-CoV-2 est située à la surface du virus avec pour principales fonctions de se lier à l’enzyme de conversion de l’angiotensine 2 (ACE2) et de faciliter l’entrée dans les cellules hôtes. La protéine S est utilisée dans la grande majorité des vaccins SARS-CoV-2, y compris les produits sous licence BNT162b (Pfizer-BioNTech) et mRNA-1273 (Moderna), ainsi que les produits EUA Ad26.COV2.S (Johnson & Johnson /Janssen) et ChAdOx1nCoV-19 (Johnson & Johnson/Janssen) (AstraZeneca).
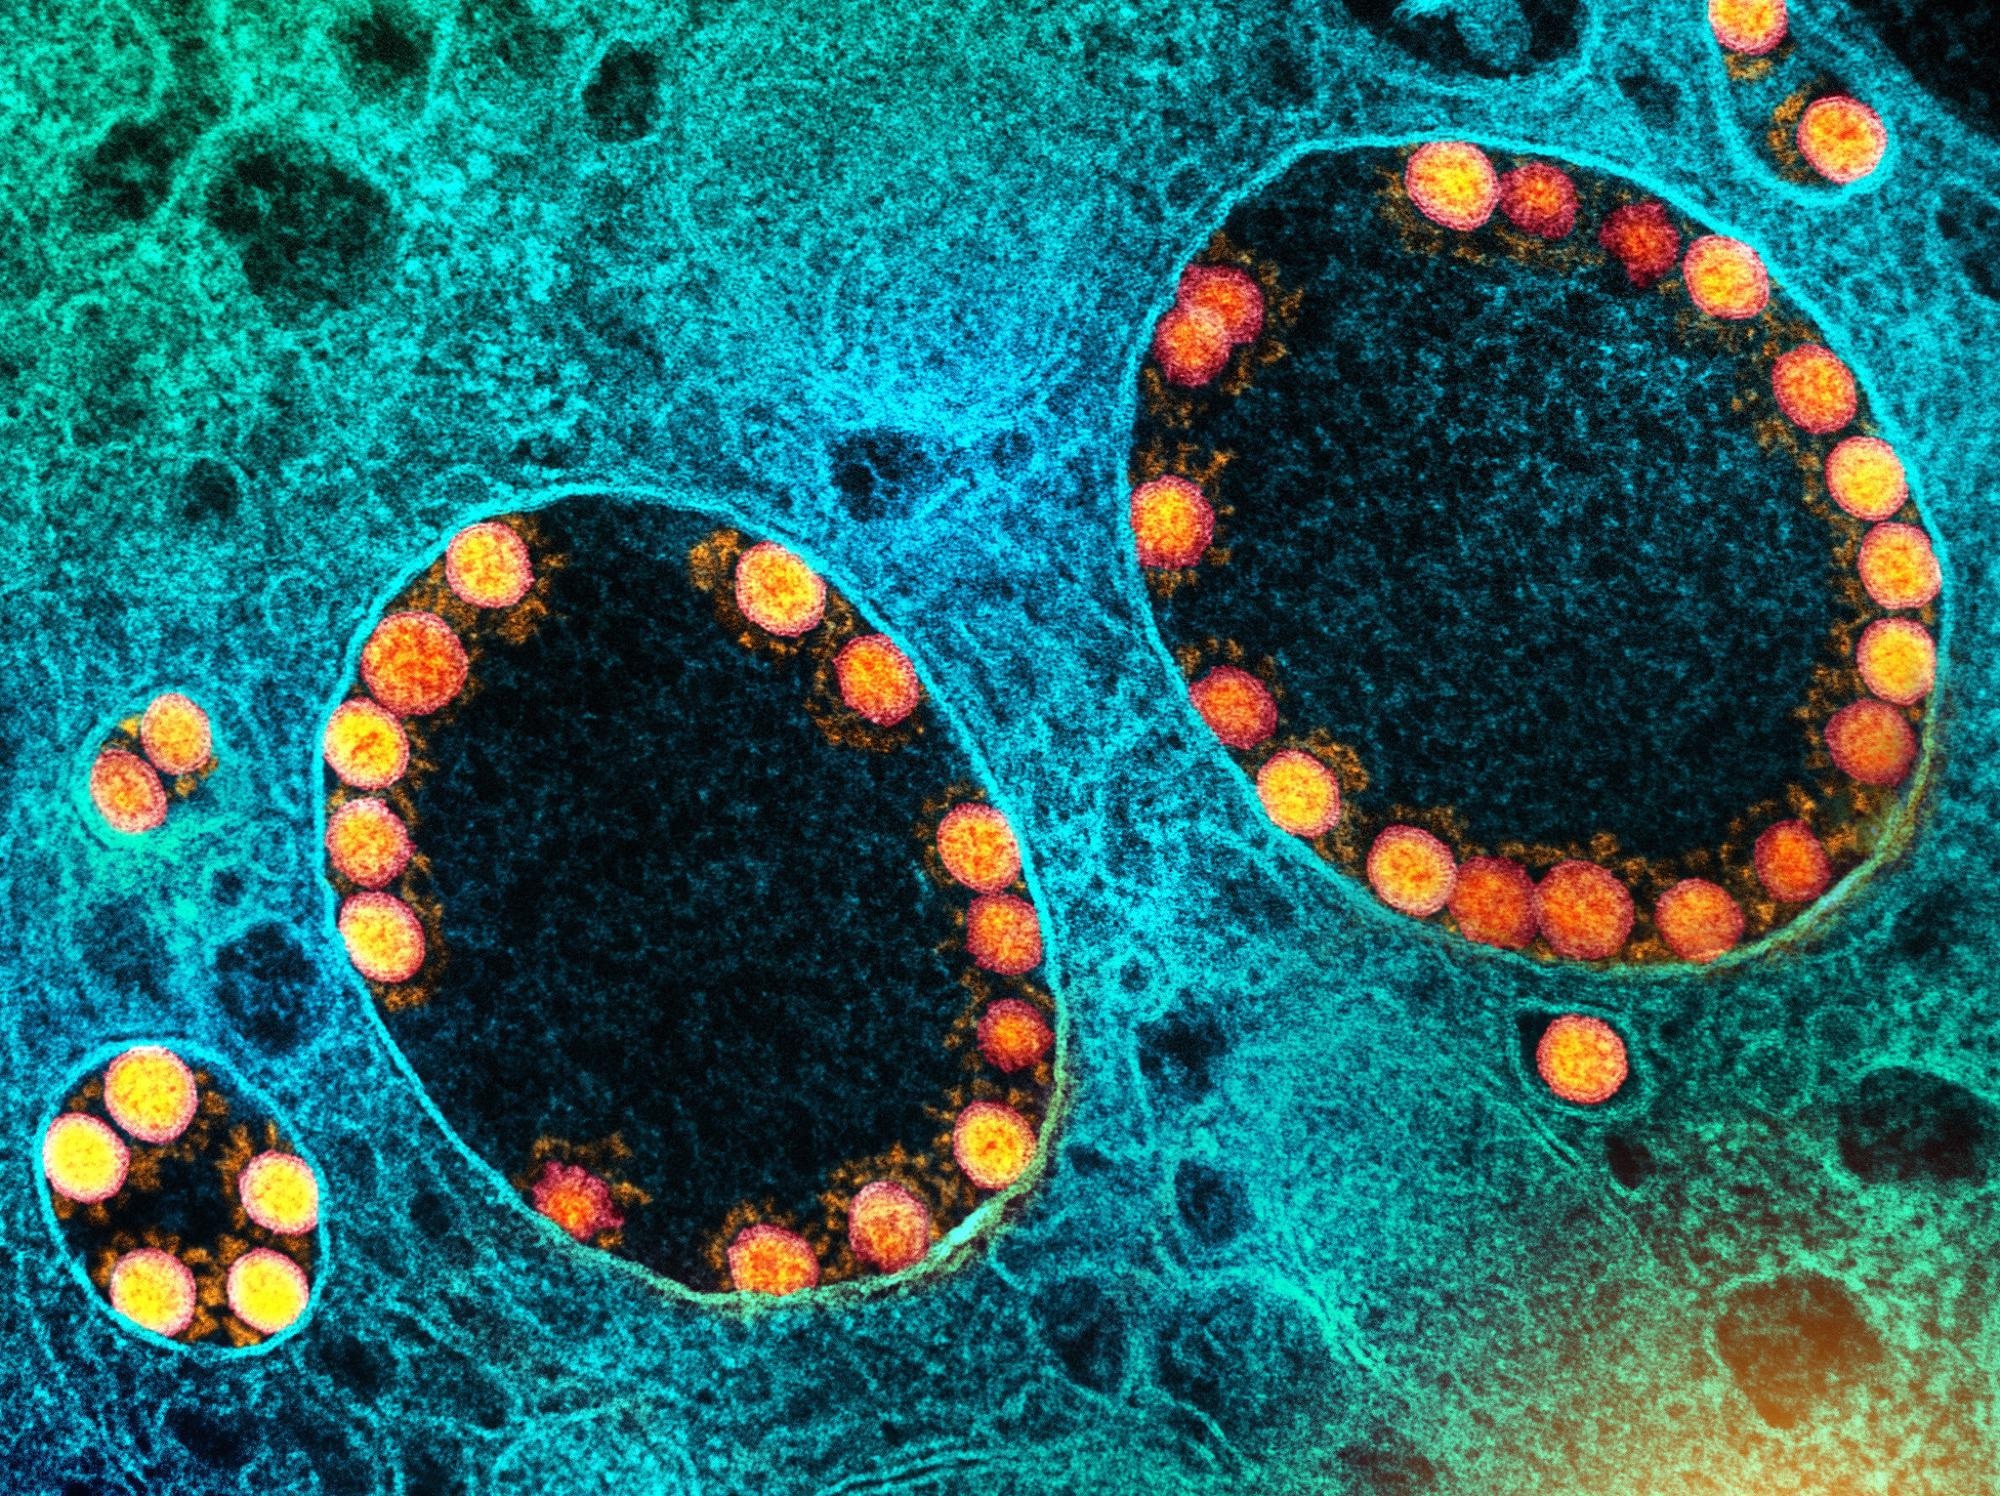
Étude : Un vaccin contre les nanoparticules de ferritine SARS-CoV-2 Spike est protecteur et favorise une forte réponse immunitaire dans le modèle de la maladie à coronavirus Cynomolgus Macaque 2019 (COVID-19). Crédit d’image : NIAID
Sommaire
Nouveau candidat vaccin contre le SRAS-CoV-2
Dans une étude récente publiée sur le bioRxiv* serveur de préimpression, l’immunogénicité et l’efficacité de la nanoparticule de ferritine de pointe SARS-CoV-2 (SpFN) adjuvantée avec de l’hydroxyde d’aluminium (AlOH3) ou de la formulation liposomale de l’armée QS-21 (ALFQ) dans un modèle COVID-19 de macaque cynomolgus (CM) a été évaluée .
Les 24 CM adultes de cette enquête ont été testés pour une exposition antérieure au SRAS-CoV-2 et se sont révélés négatifs à l’aide de trois tests : test immuno-enzymatique Euroimmun IgG (ELISA), test de neutralisation par réduction de plaque (PRNT) et test quantitatif réel- temps PCR (RT-qPCR). L’étude a été divisée en deux parties : la phase de vaccination (VP) et la phase de provocation (CP).
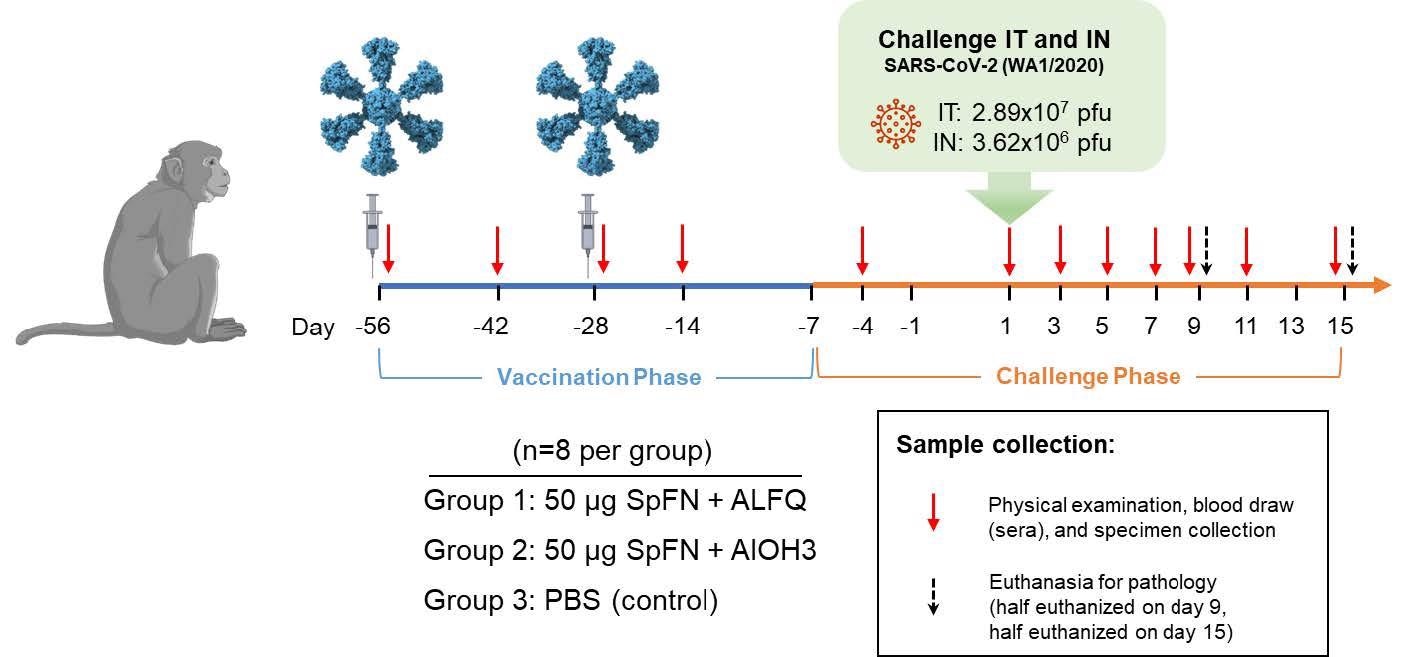
Les vaccinations ont eu lieu les jours d’étude -56 et -28 comme indiqué par les seringues dans le diagramme. Les animaux ont été provoqués avec le SRAS-CoV-2 (WA-1) le jour de l’étude 1, comme indiqué. Les jours d’examen physique et de prélèvement de sang/d’échantillon sont indiqués par des flèches rouges, et les jours d’euthanasie sont indiqués par des flèches noires.
Pendant le VP, les animaux ont été randomisés en trois groupes, chacun avec huit animaux. Ils ont été vaccinés par voie intramusculaire (IM) avec 50 µg de SpFN préparé avec l’adjuvant ALFQ (groupe 1) ou AlOH3 (groupe 2) les jours d’étude -56 et -28. Aux jours -56 et -28 de l’étude, le groupe 3 a reçu une solution saline tamponnée au phosphate (PBS) pour produire le groupe témoin. Le jour de l’étude 1, le CM a reçu une dose intratrachéale de 2,89×10⁷ unités formant plaque (pfu)/4 mL de SARS-CoV-2 et une dose intranasale de 3,62×10⁶ pfu/0,5 mL de SARS-CoV-2 (WA -1). Aux jours -4, 1, 3, 5, 7, 9, 11 et 15 de l’étude, examens physiques et sang et prélèvement [bronchoalveolar lavage (BAL) and swab] les prélèvements ont été réalisés sous anesthésie.
Analyses de pathologie clinique
Les chercheurs ont effectué des chimies cliniques et des numérations globulaires complètes sur des échantillons de sang total et de sérum. À l’exclusion de la créatine kinase, qui a été élevée au-dessus de la ligne de base pour la plupart des animaux au moins un jour d’étude VP, les altérations de la pathologie clinique pendant la VP étaient principalement ordinaires. Bien que la cause de l’augmentation de la créatine kinase ne soit pas claire, elle a probablement été causée par une inflammation ou un stress dans le tissu musculaire après les injections.
La majorité des variations des marqueurs de pathologie clinique au cours de la PC étaient similaires à celles observées précédemment et peuvent être liées à une réponse inflammatoire indiquant une infection virale continue. Des augmentations d’un ou plusieurs marqueurs leucocytaires, ainsi que de la créatine kinase et/ou de la protéine C-réactive, figuraient parmi les découvertes. À deux exceptions près : la protéine C-réactive et les monocytes, tous les changements trouvés étaient identiques entre les groupes. Les animaux témoins présentaient un changement considérablement plus élevé par rapport à la ligne de base que les animaux vaccinés dans les deux situations.
Les CM vaccinés avec SpFN présentent une réduction de la réplication virale dans les voies respiratoires
L’ARN sous-génomique du SRAS-CoV-2 (sgRNA) a été mesuré dans des écouvillons BAL et nasopharyngés (NP) par RT-PCR pour déterminer les effets de la vaccination sur la réplication du virus dans les voies respiratoires. Au troisième jour de l’enquête, les niveaux moyens d’ARNsg chez les animaux témoins étaient de 104 copies/mL dans les écouvillons BAL et NP, 7/8 animaux présentant une réplication virale substantielle dans le BAL et tous les animaux présentant une réplication virale dans le tractus nasopharyngé. Les animaux témoins présentaient des pics de titres d’écouvillonnage BAL et NP considérablement plus élevés que les animaux vaccinés. Dans le BAL de 5/8 et 6/8 animaux vaccinés dans les groupes ALFQ et AlOH3, respectivement, le sgRNA était inférieur à la limite de détection (LOD). Au jour 7, tous les animaux vaccinés présentaient un sgRNA BAL indétectable, mais 5/8 témoins présentaient une réplication détectable dans les poumons. Au jour 9 de l’essai, tous les sgRNA BAL de l’animal témoin sauf un avaient été résolus.
La RT-qPCR a été utilisée pour analyser l’ARN génomique dans les échantillons d’écouvillons BAL et NP. Les tendances étaient pour la plupart comparables à celles observées avec le sgRNA. Au jour 3 de l’essai, les niveaux d’ARN génomique du BAL chez les animaux vaccinés étaient considérablement inférieurs à ceux des animaux témoins. Contrairement aux animaux témoins, où l’ARN viral était encore détectable au jour 9, l’ARN viral dans le BAL a été identifié pour un seul animal dans chaque groupe d’immunisation après le jour 3. Au troisième jour de l’essai, tous les animaux présentaient de l’ARN viral détectable dans les écouvillons NP, avec des valeurs moyennes de 9,57, 8,68 et 9,05 Log10 équivalents génomiques (ge)/mL pour les groupes témoins, ALFQ et AlOH3, respectivement. En comparaison avec les animaux vaccinés SpFN + ALFQ, ces niveaux maximaux étaient considérablement plus élevés chez les témoins.
Une forte réponse anticorps spécifique au SRAS-CoV-2 est obtenue par la vaccination SpFN
Sur les échantillons prélevés pendant le VP et le CP, la réponse IgG et IgA totale au SRAS-CoV-2 a été analysée à l’aide de l’Euroimmun ELISA, et la réponse IgG et IgM spécifique de l’antigène a été caractérisée à l’aide du test immunologique multiplex Magpix. Deux semaines après la première vaccination, une réponse IgG a été identifiée chez les animaux vaccinés, le groupe ALFQ ayant une réaction considérablement plus importante que le groupe AlOH3. Les deux groupes ont signalé des taux d’IgG identiques à tous les moments successifs après la deuxième vaccination au jour 28, ce qui a amélioré la réponse en anticorps observée au jour 14.
Après provocation virale, il n’y a pas eu de réaction anamnestique pour les IgG totales. L’analyse Magpix de la réponse IgG spécifique de l’antigène chez les animaux vaccinés a démontré la liaison la plus élevée à S1 avant et après la provocation. De plus, après provocation virale, les anticorps de liaison S1 ont augmenté, indiquant une réponse anamnestique à cet antigène. La réponse au pic complet était sensiblement plus petite que S1 et équivalente en amplitude à la réaction produite contre RBD, bien qu’elle soit observable.
Conséquences
Après que les CM ont été exposés au SRAS-CoV-2, SpFN + ALFQ et SpFN + AlOH3 ont été efficaces pour réduire la maladie clinique. Dans des modèles de petits animaux et deux modèles de primates non humains du SRAS-CoV-2, l’efficacité et l’immunogénicité significative ont déjà été prouvées. Chez les macaques rhésus, le domaine de liaison au récepteur de la protéine de pointe seul, adjuvanté avec ALFQ, s’est avéré très efficace. Bien que SpFN + ALFQ ait surpassé SpFN + AlOH3 dans ces tests en termes d’immunologie, SpFN + AlOH3 a également suscité des réponses robustes.
La capacité du SpFN à conférer une protection confirme la nécessité d’enquêtes supplémentaires pour évaluer la portée et la longévité de la protection contre les variants du SRAS-CoV-2 et les sarbecovirus associés, y compris les doses de vaccin fractionnées, l’optimisation du calendrier de vaccination et le dosage adjuvant comparatif supplémentaire. Ces données soutiennent également l’évaluation du SpFN dans les essais cliniques en cours (numéro d’essai clinique : NCT04784767 https://clinicaltrials.gov/ct2/show/NCT04784767).
*Avis important
bioRxiv publie des rapports scientifiques préliminaires qui ne sont pas évalués par des pairs et, par conséquent, ne doivent pas être considérés comme concluants, guider la pratique clinique/les comportements liés à la santé, ou traités comme des informations établies.
