
La pandémie de la maladie à coronavirus 2019 (COVID-19) a causé plus de 5,44 millions de décès depuis son apparition fin 2019 en Chine. Plus de 9,2 milliards de doses de vaccins COVID-19 ont été administrées à ce jour ; cependant, le coronavirus 2 du syndrome respiratoire aigu sévère (SRAS-CoV-2) continue d’infecter les individus vaccinés et non vaccinés, en particulier dans les pays à faible taux de vaccination, en raison de l’indisponibilité des vaccins ou de l’hésitation à la vaccination.
Étudier: Le SRAS-CoV-2 diverge des autres bêtacoronavirus en n’activant que partiellement la voie de stress IRE1a/XBP1 ER dans les cellules dérivées du poumon humain. Crédit d’image : Vert de mercure/Shutterstock.com
Plusieurs coronavirus (CoV) sont connus pour infecter l’homme, mais seuls trois CoV zoonotiques, dont le SRAS-CoV de 2002, le coronavirus du syndrome respiratoire du Moyen-Orient (MERS-CoV) de 2012 et le SARS-CoV-2, sont connus pour causer la mort. infections. Ces trois CoV appartiennent au même groupe de coronavirus bêta mais ont des lignées différentes et provoquent tous des lésions pulmonaires aiguës et une insuffisance respiratoire hypoxémique.
Tous les CoV partagent des structures génomiques, des schémas de réplication, un portail d’entrée similaires et présentent un tropisme pour l’épithélium respiratoire. Cependant, ces CoV montrent également des différences dans les interactions hôte-virus en exprimant des protéines accessoires distinctes spécifiques à la lignée.
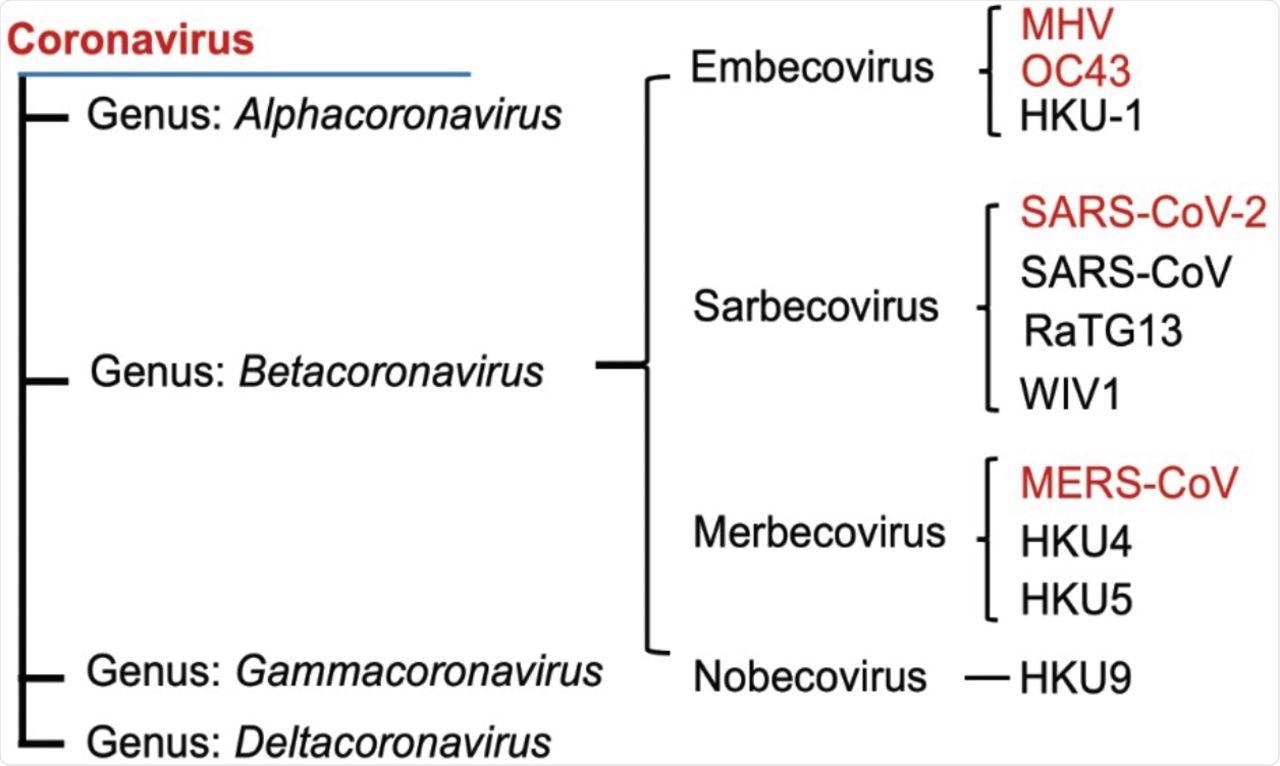
Arbre phylogénétique des bêtacoronavirus et de leurs lignées. Les virus examinés dans cette étude sont indiqués en caractères rouges.
Dans une étude récente publiée sur le serveur de préimpression bioRxiv*, le coronavirus-2 du syndrome respiratoire aigu sévère (SARS-CoV-2) s’est avéré différent des autres virus de la famille des bêta-coronavirus dans l’activation d’une voie clé associée au stress du réticulum endoplasmique (RE).
Sommaire
À propos de l’étude
Dans la présente étude, les chercheurs ont examiné si l’enzyme 1α (IRE1α)/X-box binding protein 1 (XBP1) de la réponse protéique dépliée (UPR) était nécessaire dans les lignées cellulaires épithéliales pulmonaires humaines A549 et Calu-3, ainsi comme dans les cellules alvéolaires de type II (iAT2) dérivées de cellules souches pluripotentes induites (iPSC), après infection par quatre CoV bêta. Les CoV étudiés dans cette étude comprennent le coronavirus humain OC43 (HCoV-OC43), le coronavirus murin (MHV), le MERS-CoV et le SARS-CoV-2.
Environ un tiers des protéines eucaryotes sont synthétisés par translocation co-traductionnelle dans la lumière du RE, y compris les protéines sécrétoires et membranaires. De même, les protéines virales liées à la membrane sont synthétisées et traitées dans le RE.
De plus, il est connu que la réplication du CoV induit le stress du RE, qui est détecté par trois protéines transmembranaires, notamment le facteur de transcription activant 6 (ATF6), la kinase ER de type PKR (PERK) et IRE1α. Ces protéines activent l’UPR, considérée comme essentielle à la réplication virale.
Le stress du RE induit des activités de kinase et de ribonucléase (RNase) dans IRE1α qui conduisent à l’excision d’un intron de 26 nucléotides dans l’ARNm XBP1. De plus, le XBP1 épissé (XBP1s) régule à la hausse les gènes qui élargissent la lumière du RE et sa machinerie de repliement des protéines.
Résultats de l’étude
Les auteurs ont observé que les quatre bêta CoV de HCoV-OC43, MERS-CoV, SARS-CoV-2 et MHV activent l’IRE1α dans les cellules hôtes après l’infection. Il a été noté qu’à l’exception du SARS-CoV-2, les autres CoV induisaient l’épissage de l’ARNm XBP1.
De plus, tous les CoV, à l’exception du SRAS-CoV-2, ont montré l’induction de gènes liés à l’UPR. Les chercheurs ont également démontré que le MERS-CoV et le SARS-CoV-2 se répliquent dans les cellules iAT2 et déclenchent l’activation de IRE1α.
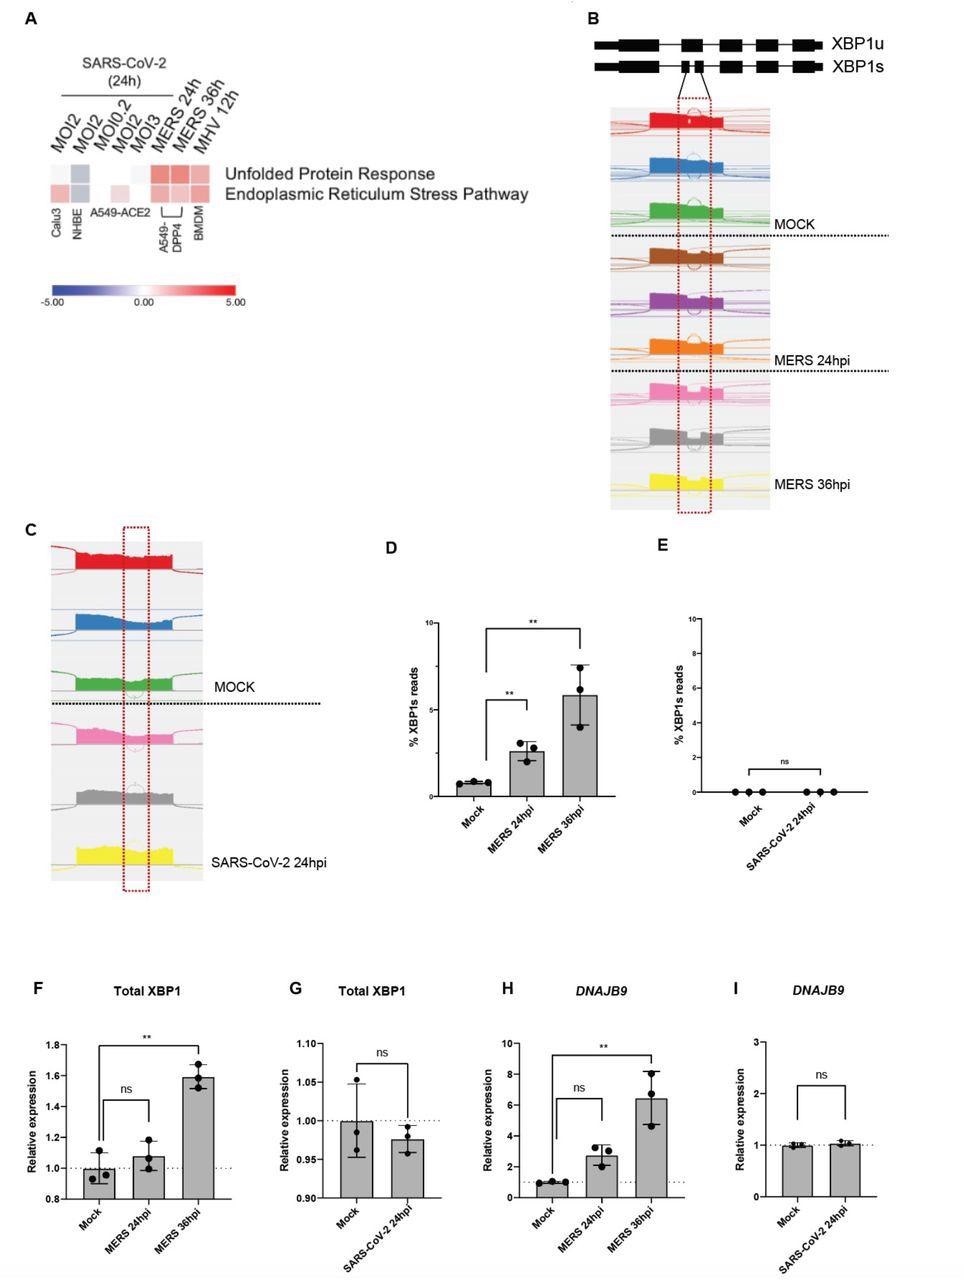
Contrairement à d’autres coronavirus, l’infection par le SRAS-CoV-2 ne conduit pas à une activation robuste de l’UPR. (A) Carte thermique de l’état de la voie prévue basée sur l’analyse de la voie d’ingéniosité (IPA) des scores z d’activation pour chaque voie à partir des données de séquençage de l’ARN des cellules indiquées infectées par le SRAS-CoV-2, le MERS-CoV ou le MHV dans des conditions spécifiées. Rouge : voie prévue pour être activée. Bleu : voie prévue pour être inhibée. Blanc : voie prévue inchangée. Gris : pas de prédiction par manque de significativité. (B&C) Quantification de l’épissage XBP1 en analysant les données RNA-Seq des cellules A549-DPP4 et A549-ACE2 faussement infectées ou infectées par le MERS-CoV ou le SARS-CoV-2, respectivement, dans les conditions indiquées. Les lectures représentant l’ARNm de XBP1 épissé ou non épissé ont été identifiées sur la base de la présence ou de l’absence de l’intron de 26 nucléotides et quantifiées. (DI) Le pourcentage de lectures épissées de XBP1 ou l’expression relative de l’ARNm total de XBP1 et DNAJB9 à partir des échantillons d’ARN-seq ont ensuite été tracés. Les valeurs sont des moyennes ± SD (barres d’erreur). La signification statistique a été déterminée par des tests t non appariés (* = P < 0,05 ; ** = P < 0,01 ; ns = non significatif).
Cependant, l’infection par le SRAS-CoV-2 n’a pas réussi à induire l’épissage de XBP1 dans ces cellules. Il a été constaté que le SARS-CoV-2 provoque une inhibition active de l’activité RNase de IRE1α.
Les chercheurs ont cherché à déterminer si IRE1α était nécessaire pour la réplication et la propagation des quatre CoV. Pour ce faire, les auteurs ont éliminé IRE1α par des répétitions palindromiques courtes régulièrement espacées (CRISPR)/édition du gène Cas9 dans les lignées cellulaires A549, qui exprimaient des récepteurs pour chaque CoV.
Les quatre CoV ont pu se répliquer dans les cellules dépourvues d’IRE1α, et le knock-out de IRE1α n’a eu aucun effet significatif sur leur réplication. Cette découverte démontre que IRE1α n’est pas essentiel pour la réplication du CoV.
Une étude knock-out similaire a été menée pour XBP1 dans des lignées cellulaires A459. De même, aucun effet significatif n’a été noté. Ces résultats fournissent la preuve qu’aucun des CoV impliqués dans la présente étude ne nécessite l’activation de IRE1α ou XBP1 pour la réplication.
Conclusion
Il a été découvert que HCoV-OC43, MERS-CoV et MHV activent la voie canonique IRE1α/XBP1 dans les lignées cellulaires A549 et Calu-3. Il a également été rapporté que le MERS-CoV pourrait activer la voie IRE1α/XBP1 dans les cellules iAT2.
L’étude a noté que le SRAS-CoV-2 pourrait activer partiellement la voie IRE1α/XBP1, comme en témoignent l’autophosphorylation de IRE1α et l’absence d’épissage de XBP1. Ceci suggère que l’activité RNase de IRE1α était inactive.
En conclusion, les chercheurs ont observé que le SARS-CoV-2 induit l’activité kinase de l’IRE1α mais inhibe activement l’activité RNase de l’IRE1α autophosphorylée par un mécanisme inconnu, que les auteurs ont proposé comme stratégie probable pour échapper à la détection par les cellules immunitaires de l’hôte.
Ces résultats présentent des preuves que le SRAS-CoV-2 produit des changements distincts dans l’activation d’IRE1α après l’infection, qui diffère de celle des autres coronavirus bêta. De plus, l’absence d’IRE1α dans les cellules hôtes n’inhibe pas nécessairement la réplication de l’un des bêta CoV testés.
*Avis important
bioRxiv publie des rapports scientifiques préliminaires qui ne sont pas évalués par des pairs et, par conséquent, ne devraient pas être considérés comme concluants, orienter la pratique clinique/le comportement lié à la santé, ou traités comme des informations établies
