Le coronavirus 2 du syndrome respiratoire aigu sévère (SRAS-CoV-2) est un virus principalement respiratoire. C’est l’agent causal de la pandémie de coronavirus en cours de 2019 (COVID-19). Dans les cas graves ou critiques, cependant, ce virus est connu pour déclencher une détérioration rapide et grave de plusieurs organes, y compris le système nerveux central.
Une nouvelle étude, publiée sous forme de pré-impression sur le bioRxiv * serveur, jette un peu de lumière sur la pathogenèse des complications neurologiques aiguës et subaiguës dans cette condition.
Sommaire
Neurodégénérescence et COVID-19
L’anosmie, ou perte de l’odorat, est un symptôme relativement courant du COVID-19, mais aussi de la maladie de Parkinson avant l’apparition des symptômes moteurs. Cette constatation, commune avec la survenue récemment rapportée de la maladie de Parkinson (MP) à un âge plus jeune que habituelle, suite à une infection par le SRAS-CoV-2, a soulevé des soupçons d’un lien entre ces deux conditions.
Auparavant également, la pandémie de grippe espagnole de 1918 a été suivie d’une épidémie d’une maladie neurologique appelée encéphalite léthargique, et par la suite de nombreux cas de parkinsonisme post-encéphalitique. De nombreux chercheurs ont découvert des liens entre les maladies virales et la maladie de Parkinson.
Les maladies neurodégénératives sont souvent caractérisées par des agrégats de protéines, tels que les peptides tau et bêta-amyloïde (Aβ) dans la maladie d’Alzheimer (MA) et l’α-synucléine (αS) dans la PD, qui forment des dépôts amyloïdes. Le processus d’agrégation commence à se propager d’une cellule à l’autre et la fonction cérébrale est affectée.
Le lien entre la neurodégénérescence et l’infection virale n’est pas clair. Une causalité directe a été suggérée par l’apparition d’agrégats peptidiques Aß dans des lignées cellulaires et chez des animaux infectés par l’herpès simplex et le virus respiratoire syncytial.
Objectifs de l’étude
L’étude actuelle explore l’effet de certaines protéines du SRAS-CoV-2 sur l’agrégation αS et son résultat final en tant que formation de fibrilles amyloïdes.
Les protéines de pointe et de nucléocapside (également connues sous le nom de protéines S et N) sont les protéines virales structurales les plus abondantes trouvées dans cette infection, cette dernière ayant un nombre de copies d’environ 1 000 par particule virale. La protéine N a une charge positive nette qui permet au génome viral, avec sa charge négative, d’être emballé dans des structures d’ordre supérieur.
Bien que la protéine de pointe médie l’infection en engageant le récepteur de la cellule hôte, la protéine N est également une cible vaccinale en raison de sa nature hautement conservée et de sa plus grande stabilité.
Agrégation αS avec la protéine N
Les chercheurs ont constaté que in vitro, l’agrégation de αS n’a montré aucun changement de la présence de protéine de pointe sur plus de 240 heures d’observation. Cependant, en présence de la protéine N, l’agrégation était d’apparition rapide, commençant dans les 24 heures. Après observation, le taux d’agrégation a changé pour atteindre un deuxième plateau.
Avec des concentrations de protéines N plus élevées, le temps de latence vers l’agrégation αS diminue encore davantage, confirmant que la protéine N interagit avec αS conduisant à son agrégation.
Ces protéines portent une charge positive et négative, indiquant que des interactions électrostatiques se produisent probablement entre elles. Avec une concentration en sel plus élevée, ces interactions sont masquées, ce qui prolonge le début de l’agrégation. Même ainsi, son temps de latence reste beaucoup plus court qu’en l’absence de la protéine N et reste dépendant de la concentration.
Avec la concentration maximale de sel, le temps de latence était encore inférieur à celui de αS seul, indiquant que d’autres interactions sont en cours, et pas seulement des forces électrostatiques.
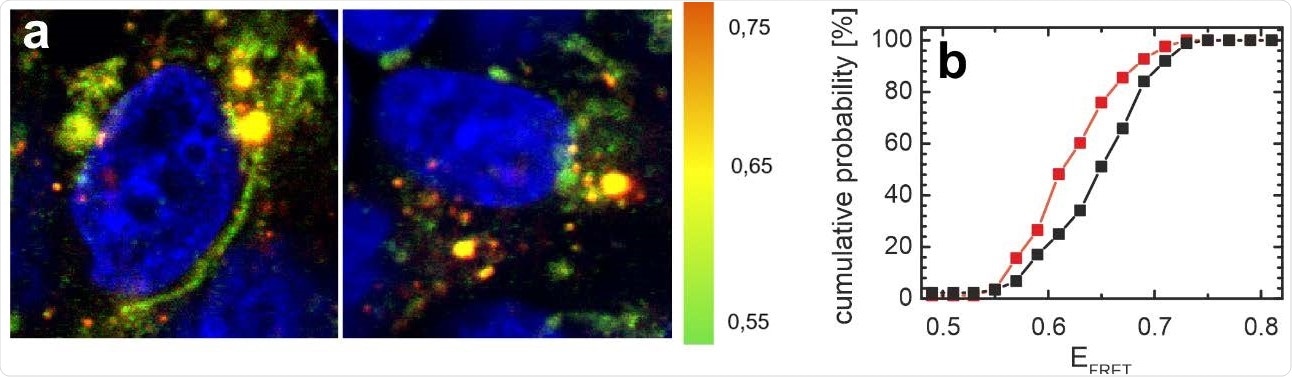
La distribution de αS dans les cellules SH-SY5Y est affectée par la protéine N. a) Images FRET de cellules micro-injectées avec la sonde αS FRET. Le code couleur représente EFRET (vert: EFRET bas; jaune: EFRET moyen; orange: EFRET élevé). Le noyau cellulaire est contre-coloré avec du DAPI et visible en bleu. Une image représentative des cellules co-injectées avec la protéine N et la sonde αS FRET est montrée à gauche, les cellules témoins à droite ont seulement été injectées avec la sonde αS FRET. b) Distribution des efficacités FRET moyennes de αS par image pour toutes les cellules injectées avec la protéine N (rouge) et les cellules témoins (noir). Les histogrammes cumulatifs contiennent des données d’au moins 80 images pour les échantillons témoins et les échantillons injectés de la protéine N. L’efficacité FRET moyenne de αS dans les cellules injectées avec la protéine N est déplacée vers des valeurs EFRET inférieures.
Agrégation αS en deux étapes
Les chercheurs ont utilisé une technique appelée test de thermophorèse à l’échelle microscopique, qui détecte les changements dans le coefficient de diffusion des particules lors de la liaison à une autre. Cela a montré un changement brusque de αS libre à αS lié, indiquant que la liaison coopérative était à l’œuvre.
Ils ont également utilisé des expériences de spectroscopie de corrélation de fluorescence (FCS) pour explorer le nombre de αS dans les complexes αS / N. Cela a montré qu’à des concentrations plus élevées de N, une diffusion lente se produisait en raison de la formation d’un complexe. Avec αS seul, une seule molécule se diffuse.
Au fur et à mesure que la concentration en protéine N augmente, une deuxième molécule diffusante apparaît, qui a un coefficient de diffusion beaucoup plus lent. La luminosité moyenne indique que l’αS dans les complexes est presque deux fois plus brillant que celui de l’αS libre.
Ils ont conclu que 3-4 αS est présent par complexe, même en excès de protéine N. Cela indique que lorsque αS est en excès, des nombres encore plus élevés peuvent s’accumuler sur la protéine N.
Morphologies de type fibrilles amyloïdes
Deux plateaux d’intensité de fluorescence sont observés avec des périodes d’observation plus longues, le plateau étant plus élevé que le premier plateau. En explorant cela avec la microscopie à force atomique (AFM), les chercheurs ont trouvé des fibrilles amyloïdes sous forme hélicoïdale, mais avec des formes différentes sur les deux plateaux.
Le premier a montré deux types de fibrilles où les spires de l’hélice sont de longueurs différentes. Le deuxième plateau montre des fibrilles homogènes de 130 nm, comme l’une des morphologies de fibrilles du premier plateau. Ceci est concordant avec les fibrilles amyloïdes αS attendues formées sans protéine N.
En d’autres termes, la protéine N accélère la formation de fibrilles amyloïdes αS mais préserve leur morphologie intacte.
La protéine αS est une protéine avec un trouble intrinsèque trouvé sur les vésicules membranaires, et sa fonction principale est probablement le remodelage membranaire, lié aux tâches de mémoire. Dans son emplacement membraneux, il a une structure α-hélicoïdale.
Protéostase altérée
En utilisant une méthode appelée transfert d’énergie de résonance de Förster (FRET), les chercheurs ont examiné comment l’αS est redistribué dans une lignée cellulaire neuronale. Cela a montré que dans une période similaire, les cellules qui avaient reçu une micro-injection de N étaient deux fois plus susceptibles d’être mortes que les témoins, qui avaient 10% de cellules mortes.
Chez les témoins, l’αS est distribué entre les vésicules et le cytosol, le premier ayant une valeur FRET élevée. Après micro-injection de protéine N, une distribution apparemment similaire est observée, mais avec un signal FRET moins élevé, indiquant une perturbation de la protéostase αS, et donc une diminution de αS lié aux vésicules.
Ainsi, la microinjection N conduit à une redistribution de αS entre différents états conformationnels au fur et à mesure qu’ils perdent leur fonction. Cependant, la protéine N n’interagit pas avec αS dans le domaine N-terminal, ou bien sa liaison ici ne parvient pas à provoquer un changement conformationnel de αS. La protéostase perturbée peut refléter l’initiation de la nucléation des fibrilles.
Quelles sont les implications?
Ces résultats montrent que l’αS s’agrège rapidement mais en deux étapes en présence de protéine N. Cela se produit dans un processus en deux étapes. La première étape de la nucléation des fibrilles se produit rapidement, conduisant à un plateau où la masse de fibrilles est faible.
Ces fibrilles conduisent à la formation ou peut-être à leur conversion en un autre plateau plus élevé qui est plus stable. Celui-ci contient plus de fibrilles et est plus brillant. Ces deux étapes se produisent sensiblement plus rapidement que l’absence de protéine N.
La liaison N-αS provoque une compensation de charge, qui expose la région NAC de αS, qui est rapide à s’agréger, ainsi que l’abolition des interactions électrostatiques qui repoussent d’autres molécules αS. La présence d’autres protéines αS dans le complexe qui est susceptible de former des agrégats peut améliorer la nucléation et ainsi déclencher une nouvelle agrégation, ainsi que réduire le temps de latence.
Le changement des valeurs FRET indique l’effet de la protéine N sur la protéostase αS, cette dernière protéine montrant une affinité élevée ou plus élevée pour la première par rapport aux autres interactions αS.
« Nos résultats suggèrent que le lien observé entre l’infection par le SRAS-CoV-2 et la maladie de Parkinson pourrait provenir d’une interaction moléculaire entre les protéines virales et αS« D’autres études sont nécessaires pour confirmer les dommages à long terme causés par le virus. Certes, cela doit être exclu avant d’utiliser la protéine N dans les vaccins.
*Avis important
bioRxiv publie des rapports scientifiques préliminaires qui ne sont pas évalués par des pairs et, par conséquent, ne doivent pas être considérés comme concluants, guider la pratique clinique / les comportements liés à la santé, ou traités comme des informations établies.
